Racionálny prístup k identifikácii účinných kombinovaných antikoronavírusových terapií proti mačaciemu koronavírusu

9.7.2020
S.E. Cook, H. Vogel, D. Castillo, M. Olsen, N. Pedersen, B. G. Murphy
Pôvodný článok: A rational approach to identifying effective combined anticoronaviral therapies against feline coronavirus

Abstrakt

Mačací infekčný zápal pobrušnice (FIP), spôsobený genetickým mutantom mačacieho enterického koronavírusu známym ako FIPV, je smrteľným ochorením mačiek, pre ktoré v súčasnosti nie je k dispozícii žiadna vakcína alebo liečba schválená FDA. Šírenie FIPV u postihnutých mačiek vedie k radu klinických príznakov vrátane kavitárnych výpotkov, anorexie, horúčky a lézií pyogranulomatóznej vaskulitídy a perivaskulitídy s alebo bez postihnutia centrálneho nervového systému a/alebo oka. Vznikla kritická potreba účinných a schválených antivírusových terapií proti koronavírusom vrátane FIPV a zoonotických koronavírusov, ako je SARS-CoV-2, pôvodcu COVID-19. Pokiaľ ide o SARS-CoV-2, predbežné dôkazy naznačujú, že môžu existovať potenciálne klinické a patologické spoločné znaky s mačacím koronavírusovým ochorením, vrátane enterického a neurologického postihnutia. Skúmali sme 89 vytipovaných antivírusových zlúčenín a identifikovali sme 25 zlúčenín s antivírusovou aktivitou proti FIPV, ktoré predstavujú rôzne triedy liekov a mechanizmov antivírusového pôsobenia. Na základe úspešných stratégií kombinovanej liečby u ľudských pacientov s infekciou HIV alebo vírusom hepatitídy C sme identifikovali kombinácie liekov zameraných na rôzne fázy životného cyklu FIPV, ktoré vedú k synergickému antivírusovému účinku. Podobne navrhujeme, aby sa kombinovaná antikoravírusová terapia (cACT) s viacerými mechanizmami účinku a penetrácie do všetkých potenciálnych anatomických miest vírusovej infekcie aplikovala na liečbu ďalších koronavírusov, ako je SARS-CoV-2.

Zhrnutie autora

In vitro sme testovali antivírusovú aktivitu proti FIPV u 89 zlúčenín. Antivírusová aktivita týchto zlúčenín spočivala buď v priamom účinku na vírusové proteíny zapojených do replikácie vírusu, alebo v nepriamom inhibičnom účinku na normálne bunkové procesy uzurpované FIPV na podporu replikácie vírusu. Dvadsaťpäť z týchto zlúčenín vykázalo významnú antivírusovú aktivitu. Zistili sme aj to, že určité kombinácie týchto zlúčenín sú účinnejšie ako samotná monoterapia.

Slovník

SkratkaAnglický výrazSlovenský preklad
PIprotease inhibitorinhibítor proteázy
NPInucleoside polymerase inhibitornukleozidový inhibítor polymerázy
NNPInon-nucleoside polymerase inhibitornenukleozidový inhibítor polymerázy
CPEcytopathic effect cytopatický efekt
cACTcombined anti-coronaviral therapykombinovaná antikoronavírusová terapia
cARTcombined anti-retroviral therapykombinovaná antiretrovírusová terapia
CRFK cellsCrandell-Rees Feline Kidney cellsCrandell-Rees mačacie obličkové bunky

Úvod

Mačacia infekčná peritonotída (FIP) je vysoko smrteľné ochorenie bez účinnej vakcíny alebo liečby schválenej FDA. Aj keď patogenéza nie je úplne objasnená, všeobecne sa predpokladá, že FIP je výsledkom špecifických mutácií vo vírusovom genóme minimálne patogénneho a všadeprítomného mačacieho enterického koronavírusu (FECV), ktoré vedú k vzniku virulentného vírusu FIP (FIPV) [1–3]. Tieto mutácie FECV vedú k zmene tropizmu vírusom napadnutej hostiteľskej bunky z intestinálnych enterocytov na makrofágy peritoneálneho typu. Produktívna infekcia makrofágov vírusom FIPV, cielená rozsiahla anatomická diseminácia a imunitne sprostredkovaná perivaskulitída vedú k vysoko smrteľnému systémovému zápalovému ochoreniu FIP [4]. V dôsledku vírusovej diseminácie sa FIP môže prejavovať klinickými príznakmi odrážajúcimi zápal na rôznych anatomických miestach, ktoré môžu potenciálne zahŕňať brušnú dutinu a vnútornosti, hrudnú dutinu, centrálny nervový systém a/alebo oči [5–8]. Kvôli vysokej úmrtnosti FIP zostáva devastujúcim vírusovým ochorením mačiek a výzvou pri stanovení presnej etiologickej diagnózy za súčasného nedostatku dostupných a efektívnych možností liečby [7, 9]. Vývoj účinnej vakcíny proti FIP bol komplikovaný úlohou na protilátkách závislého zosilnenia (ADE) v patogenéze choroby FIP, kde sa ukázalo, že prítomnosť neneutralizujúcich antikoronavírusových protilátok zhoršuje ochorenie FIP [10–12] .

Koronavírusy u cicavcov infikujú a spravidla spôsobujú ochorenie črevného traktu alebo dýchacieho systému infikovaných hostiteľov [13]. FIP sa však často prejavuje ako syndróm multisystémového zápalového ochorenia v dôsledku rozsiahleho šírenia makrofágov infikovaných FIPV. Nedávny pandemický výskyt SARS-CoV-2 má u infikovaných ľudských pacientov za následok rôzne syndrómy choroby, súhrnne označovanej ako COVID-19. Aj keď má SARS-CoV-2 zjavný tropizmus pre respiračný epitel, ktorý vedie k intersticiálnej pneumónii, nedávne dôkazy naznačujú, že COVID-19 sa môže prejavovať aj ako zažívacie ochorenie a klinicky sa prejavovať ako hnačka [14, 15]. Tropizmus pre tieto tkanivá odráža membránovú expresiu proteínu ACE2, bunkového cieľa SARS-CoV-2 [16]. Ďalej sa ukazuje, že SARS-CoV-2 je schopný infikovať a spôsobiť zápalové ochorenie v tkanivách mimo črevného traktu a dýchacích ciest, vrátane mozgu, očí, reprodukčných orgánov a srdcového myokardu [17–21]. Neuroinvazia mozgového kmeňa a následná encefalitída spôsobená SARS CoV-2 môžu prispieť k respiračnému zlyhaniu u pacientov s COVID-19 [20,22]. Experimentálne je SARS CoV-2 schopný vytvoriť produktívnu infekciu u mačiek [23]. Infekcia FIPV mačiek a infekcia SARS CoV-2 u ľudských pacientov sa preto podobajú viac, ako sa pôvodne zdalo.

Vznikla okamžitá a kritická potreba dostupných a účinných antivírusových terapií na liečenie týchto koronavírusových chorôb. Mačky infikované FIPV by mohli slúžiť ako translačný model a poskytnúť užitočné poznatky použiteľné pre pacientov infikovaných SARS-CoV-2 s COVID-19. Posledné antivírusové klinické štúdie u mačiek experimentálne aj prirodzene infikovaných FIPV priniesli nádej pre liečbu a vyliečenie FIP pomocou GS-441524, nukleozidového analógu a metabolitu proliečiva Remdesivir (Gilead Sciences) alebo GC-376, 3C-like inhibítora proteázy FIPV (Anivive) [24–26]. Remdesivir, prodrug GS-441524, sa nedávno ukázal byť sľubným pri liečbe ľudských pacientov infikovaných SARS-CoV-2 [27,28]. Napriek týmto nedávnym klinickým úspechom musia byť tieto antivírusové zlúčeniny ešte schválené a v súčasnosti nie sú k dispozícii na klinické veterinárne použitie u mačiek s FIP.

Identifikácia a vývoj účinných antivírusových terapií môžu byť nákladné aj časovo náročné. Cielený skríning a opakované použitie liekov už schválených FDA alebo schválených na výskumné použitie, môžu hrať efektívnu úlohu pri objavovaní liekov. Použitím predpokladaných antivírusových zlúčenín vybraných na základe ich preukázanej účinnosti pri liečbe iných RNA-vírusov sme identifikovali podskupinu zlúčenín so silnou anti-FIPV aktivitou a charakterizovali ich profily bezpečnosti a účinnosti in vitro. Na základe veľkého úspechu kombinovanej antiretrovírusovej terapie (cART) proti HIV-1 a kombinovanej liečby vírusu hepatitídy C [29] sme vyvinuli metódy na identifikáciu účinných kombinačných terapií proti FIPV. Počiatočné monoterapie proti HIV-1, ako je azidotymidín (AZT), často viedli k vírusovým únikovým mutáciám. Zdá sa, že súčasné použitie viacerých antivírusových zlúčenín blokuje tento adaptívny vírusový evolučný mechanizmus, pretože vývoj HIV-1 je modernými cART účinne zastavený [30]. Úspešnosť cART je výsledkom farmakologického zamerania na viac stupňov životného cyklu vírusu súčasne, pričom sa spoločne dosahuje synergický antivírusový účinok [31].

Vzhľadom na pôsobivý úspech cART by sa mohlo javiť, že súčasné zacielenie na FIPV v rôznych fázach životného cyklu vírusu kombinovanou antikoronavírusovou terapiou (cACT) môže ponúknuť vyššiu úroveň trvalého a úplnejšieho úspechu, v porovaní s monoterapiami samotnými. Zahrnutie antivírusového agenta do cACT schopného preniknúť hematoencefalickou (BBB) ​​a hematookulárnou bariérou, a dosiahnuť farmakologicky relevantné tkanivové koncentrácie môže uľahčiť eradikáciu FIPV v celom systéme. Popisujeme tu súbor in vitro testov uľahčujúcich rýchly skríning a identifikáciu účinných antikoronavírusových zlúčenín. Účinné antivírusové látky s rôznymi mechanizmami účinku a predpokladanou distribúciou v tele boli kombinované do cACT a testované na synergiu zlúčenín. Predpokladali sme, že kombinované použitie dvoch alebo viacerých účinných antivírusových monoterapií s rôznymi mechanizmami účinku uľahčí identifikáciu synergických kombinácií poskytujúcich vynikajúcu antikoronavírusovú účinnosť v porovnaní s ich samostatným použitím. Identifikácia úspešnej cACT môže tiež poskytnúť vodítka k liečbe ďalších objavujúcich sa vírusových ochorení, ako je SARS-CoV-2.

Výsledky

Testovanie zlúčenín

Na identifikáciu zlúčenín s anti-FIPV aktivitou bola in vitro testovaná skupina 89 zlúčenín (doplnková tabuľka 1) z rôznych tried liečiv a s rôznymi predpokladanými mechanizmami účinku. Testované zlúčeniny zahŕňali inhibítory nukleozidovej polymerázy (NPI), nenukleozidové polymerázové inhibítory (NNPI), inhibítory proteázy (PI), NS5A inhibítory, súbor nových anti-helikázových chemických „fragmentov“ a súbor zlúčenín s neurčenými mechanizmami účinku . Z tejto skupiny 89 zlúčenín sa ukázalo, že celkovo 25 rôznych zlúčenín vykazuje antivírusovú aktivitu proti FIPV vrátane NPI, PI, inhibítorov NS5A a dvoch zlúčenín s neurčenými mechanizmami účinku (označovaných ako „iné“, obr. 1). Medzi tieto úspešné antivírusové látky patrili toremiféncitrát, daklatasvir, elbasvir, lopinavir, ritonavir, nelfinavirmesilát, K777 / K11777, grazoprevir, amodiaquín, EIDD 1931, EIDD 2801 a GS-441524 pochádzajúce od troch rôznych čínskych výrobcov (tabuľka 1, obr. 2). Testovali sme niekoľko nukleozidových analógových zlúčenín poskytnutých spoločnosťou Gilead Sciences štrukturálne príbuzných nukleozidovým analógom GS-441524 a Remdesivir na ich antivírusové vlastnosti a našli sme niekoľko s potenciálom (obsiahnutých vo vyššie uvedených 25 identifikovaných zlúčeninách), ale tieto látky sme ďalej nesledovali. Pre ďalšie analýzy bolo vybraných 13 antivírusových látok. Tento celkový počet zahrňuje už pretým identifikovaný 3-C inhibítor proteázy, GC-376 (Anivive).

Názov zlúčeninyKategória liekuEC50 (µM)
GC376PI0.04
EIDD 1931NPI0.09
ElbasvirNS5A Inhibitor0.16
EIDD 2801NPI0.4
GS-441524+NPI0.66
K777/K11777PI0.67
Toremifene citrateIné*5
AmodiaquineIné**6.5
LopinavirPI8.08
RitonavirPI8.7
GrazoprevirPI12.13
Nelfinavir mesylatePI13.47
Tabuľka 1.
EC50 zlúčenín s anti-FIPV aktivitou.
PI = Inhibítor proteázy; NPI = Nukleozidový inhibítor polymerázy
+ MedChem Express, HY-103586
* Selektívny modulátor estrogénových receptorov
** 4-Aminoquinoline
Obrázok 1
Testované zlúčeniny podľa mechanizmu účinku
(A) Všetky testované zlúčeniny
(B) Zlúčeniny, u ktorých bola pri testoch in vitro zistená anti-FIPV aktivita
Obrázok 2
Príklad testovacej matrice využívajúcej farbenie kryštálovou violeťou na identifikáciu anti-FIPV aktivity pri 10μM.
Horný ľavý riadok sú kontrolné jamky iba s CRFK bunkami a bez liečiva alebo FIPV. Pravý horný riadok je pozitívna kontrola využívajúca GS-441524 so známou úplnou ochranou CRFK buniek pred FIPV-indukovanou bunkovou smrťou. Celý spodný rad jamiek predstavuje CRFK bunky infikované FIPV a bez liečby. Zvyšné riadky sú testovacie jamky, pričom ľavá polovica hodnotí cytotoxicitu pri 10μM (bez infekcie FIPV) a pravá polovica hodnotí anti-FIPV aktivitu pri 10μM pre ktorúkoľvek danú zlúčeninu. Strata zafarbenia naznačuje stratu buniek. Daklatasvir a velpatasvir demonštrovali anti-FIPV aktivitu, o čom svedčí zvýšené farbenie kryštálovou violeťou (relatívne intaktné bunkové monovrstvy) v porovnaní s kontrolnými jamkami obsahujúcimi iba FIPV (spodný rad doštičky). Lieky 32, 33 a 34 vykazovali neprítomný až minimálny antivírusový účinok, zatiaľ čo liečivo 34 (Ravidasvir) tiež vykazovalo cytotoxicitu pri koncentrácii 10μM na základe dramatického vyčistenia jamiek pozorovaného v ľavej polovici matrice bez FIPV.

Stanovenie antivírusovej účinnosti

Antivírusová účinnosť (EC50) sa stanovila pre 10 antivírusových zlúčenín. Pre tieto zlúčeniny bola EC50 v rozmedzí od 0,04μM do 13,47μM (tabuľka 1, obr. 3). Jedna z antivírusových látok, Daclatasvir, preukázal neprijateľnú cytotoxicitu pri 20μM a bol vyradený z ďalšieho testovania. Ukázalo sa, že GS-441524 pochádzajúci z Číny (MedChemExpress, HY-103586) má porovnateľnú EC50 v porovnaní s predtým publikovanými hodnotami pre GS-441524 pochádzajúci z Gilead Sciences [25].
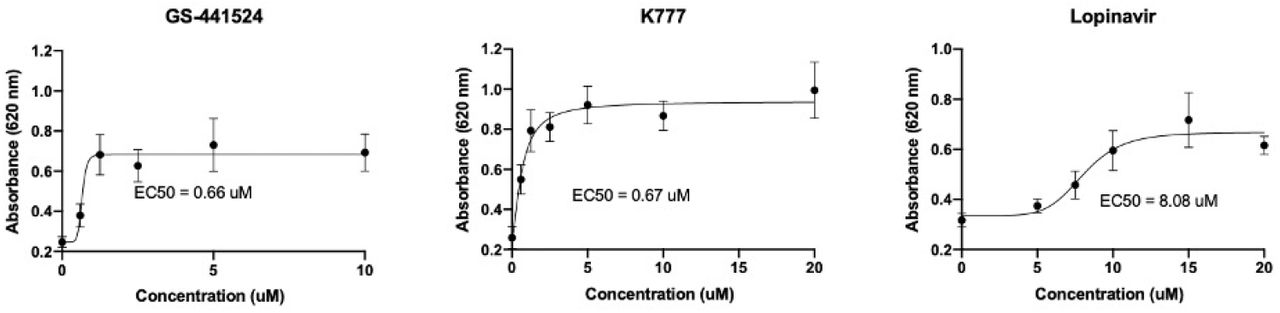
Obrázok 3
Reprezentatívne príklady nelineárnych regresných analýz EC50 pre zlúčeniny s anti-FIPV aktivitou.

Na identifikáciu polovičnej maximálnej efektívnej koncentrácie (EC50) sa uskutočnili sériové riedenia každej zlúčeniny s anti-FIPV aktivitou. Tu uvedené výsledky GS-441524 predstavujú zlúčeninu pochádzajúcu z MedChemExpress.

Bezpečnostné profily cytotoxicity

Profily bezpečnosti na cytotoxicitu (CSP) sa stanovili pre desať rôznych antivírusových zlúčenín v bunkách CRFK. Pri 5μM sedem testovaných zlúčenín nevykazovalo v podstate žiadnu cytotoxicitu, zatiaľ čo dve z antivirotík, amodiaquine a toremifene, mali 11, respektíve 12% cytotoxicitu (obr. 4; tabuľka 2). 50% cytotoxická koncentrácia (CC50) pre GC376 sa uvádza ako >150μM [32]. Je zaujímavé, že na základe testu Promega CellTox ™ Green Cytotoxicity bola cytotoxicita obidvoch EIDD zlúčenín v podstate nedetegovateľná až do 100μM. Vizuálna kontrola jamiek s EIDD tesne pred aplikáciou fluorescenčného farbiva a odčítaním z matrice však odhalila rozdiely v morfológii buniek (cytopatický účinok) medzi neliečenými CRFK bunkami a liečenými bunkami. Neliečené CRFK bunky sa vyznačovali adherentnou vretenovou morfológiou v jednej monovrstve, zatiaľ čo jamky s EIDD preukázali zreteľný pokles konfluencie v porovnaní s variabilnou morfológiou buniek vrátane zaokrúhľovania buniek (cytopatický účinok). Rozpor medzi subjektívnym vizuálnym hodnotením jamiek s EIDD a fluorescenčným testom je záhadou. Je možné, že celkové zníženie počtu buniek v jamkách s EIDD viedlo k strate a degradácii nukleovej kyseliny nevyhnutnej na fluorescenčné viazanie a detekciu v teste CellTox.

ZlúčeninaKategória lieku5μM10μM25μM50μM100μM
ElbasvirNS5A Inhibítor0.670.461.424.9
K777/K11777PI0.610.292.3916
Toremifene citrateIná*1222233539
AmodiaquineIná**1112192326
LopinavirPI0.6715131618
RitonavirPI0.490.8423326
GrazoprevirPI0.5500.813.919
EIDD1931NPI1.20.940.60.782.8
EIDD2801NPI00.950.631.70.8
GS-441524+NPI0.210000
Tabuľka 2
Percento cytotoxicity podľa zlúčeniny a koncentrácie.
PI = Inhibítor proteázy; NPI = Nukleozidový inhibítor polymerázy
* Selektívny modulátor estrogénových receptorov
** 4-Aminoquinoline
+ NMPharmTech
Obrázok 4
Reprezentatívne profily cytotoxicity.
Stĺpcové grafy percenta cytotoxicity +/- štandardná odchýlka (SD) pre štyri zlúčeniny s anti-FIPV aktivitou. Percentuálne hodnoty cytotoxicity sa stanovili normalizáciou cytotoxicity pre kontrolné jamky s pozitívnou toxicitou (nastavená na 100% cytotoxicitu) a neliečené bunky CRFK (nastavené na 0% východiskovej cytotoxicity).

Kvantifikácia inhibície produkcie vírusovej RNA pri monoterapii

Na meranie schopnosti každej antivírusovej látky inhibovať koronavírusovú replikáciu pri monoterapii (Vírusový RNA knock-down test) sa použil test RT PCR v reálnom čase. Zlúčeninami demonštrujúcimi najväčšiu inhibíciu produkcie FIPV RNA boli GC376, 3C-like inhibítor koronavírusovej proteázy, GS-441524, EIDD-1931 a EIDD-2801, pričom posledné tri boli nukleozidové analógy (obr. 5, tabuľka 3). Medzi látky s najmenším inhibičným účinkom na produkciu vírusovej RNA patria elbasvir, nelfinavir a ritonavir. Ritonavir, inhibítor proteázy, sa používa v kombinácii s lopinavirom na liečbu infekcie HIV-1 (Kaletra, AbbVie). Monoterapia lopinavirom má u ľudí neuspokojivú orálnu biologickú dostupnosť, avšak pri použití v kombinácii sa ukázalo, že ritonavir výrazne zlepšuje plazmatickú koncentráciu lopinaviru [33]. Preto aj napriek relatívne minimálnej inhibícii FIPV identifikovanej s ritonavirom ako monoterapiou, bola táto zlúčenina predmetom ďalšieho testovania vrátane kombinovaného antikoravírusového hodnotenia.

ZlúčeninaNásobok redukcie titra vírusu
GC376 (20μM)25000
GC3767300
GS-441524 (NMPharmTech)5280
EIDD-19313700
GS-441524 (MedChemExpress)3500
EIDD-28012110
Lopinavir309
Toremifene10
K7777
Grazoprevir5
Amodiaquine4
Elbasvir2
Nelfinavirmesylate1
Ritonavir1
Tabuľka 3
Násobné zníženie počtu kópií vírusovej RNA pre anti-FIPV zlúčeniny pri monoterapii
*Pokiaľ nie je uvedené inak, všetky zlúčeniny sa použili pri 10 μM.
Obrázok 5
Násobné zníženie počtu kópií FIPV RNA s použitím antivírusových zlúčenín pri monoterapii.

FIPV-infikované CRFK bunky sa inkubovali 24 hodín so zlúčeninami so zistenou anti-FIPV aktivitou. Počet vírusových kópií sa následne stanovil pomocou RT-qPCR a normalizoval sa na počet mačacích GAPDH kópií, aby sa určil účinok násobného zníženia pre každú zlúčeninu. Všetky zlúčeniny sa testovali pri 10μM, pokiaľ nie je uvedené inak. Všetky experimentálne ošetrenia sa uskutočňovali v triplikátových jamkách a násobný pokles sa vypočítal vydelením priemerného experimentálneho normalizovaného počtu kópií FIPV priemerným normalizovaným počtom kópií FIPV stanoveným pre neošetrené jamky infikované FIPV.
1GS-441524 – NMPharmTech (Čína).
2GS-441524 – MedChemExpress (Čína).

Kvantifikácia inhibície produkcie vírusovej RNA pri cACT

Na identifikáciu kombinácií liekov so synergickým antivírusovým účinkom oproti monoterapii sa vybrali kombinácie dvoch alebo viacerých zlúčenín na základe (i) zavedených kombinácií používaných pri iných vírusových infekciách, ako je HIV-1 a HCV, (ii) liekov s rôznymi mechanizmami účinku , (iii) potenciálnych zmien v systémovej distribúcii zlúčeniny (napr. schopnosti preniknúť cez hematoencefalickú alebo hematookulárnu bariéru podľa chemickej klasifikácie) a (iv) minimálnej cytotoxicity (na základe CSP). Pre každú cACT bolo akékoľvek výsledné zníženie počtu kópií FIPV prevyšujúce vypočítaný aditívny účinok pre každé liečivo použité v režime monoterapie považované za synergické (tabuľka 4). Najväčší synergický účinok s najvyšším celkovým násobným znížením vírusovej RNA, dosiahla kombinácia GC376 a amodiaquinu so 76-násobným znížením vírusovej RNA v porovnaní s aditívnym účinkom (obr. 6). Táto konkrétna synergická kombinácia bola jedným z prekvapujúcich výsledkov vzhľadom na to, že samotný amodiaquín preukázal iba obmedzenú inhibíciu kópií vírusovej RNA FIPV stanovenú pomocou qRT-PCR.

Zlúčenina 1Zlúčenina 2Zlúčenina 3Redukcia titra vírusuAddcACT/add
GC376 (20 uM)Amodiaquine—18970002500476
GC376 (20 uM)AmodiaquineToremifene2560002501410
GC376 (20 uM)K777—2480002500710
GC376 (20 uM)Toremifene—128000250105.1
GC376 (20 uM)Nelfinavir mesylate—91100250013.6
Elbasvir (5 uM)Lopinavir—1400031145
Elbasvir (5 uM)GC376 (20 uM)—12600250020.50
GC376 (10 uM)Amodiaquine—1170073041.6
GC376 (10 uM)Grazoprevir—829073051.1
GC376 (20 uM)GS-441524 (NMPharmTech)8260302800.27
GC376 (10 uM)AmodiaquineElbasvir (5 uM)757073061.0
GC376 (10 uM)GS-441524 (MedChem)—6910108000.64
GC376 (20 uM)Ritonavir—6560250010.26
K777Lopinavir—553031618
GC376 (10 uM)GS-441524 (NMPharmTech)—4340125800.34
GC376 (20 uM)Lopinavir—3400253090.13
LopinavirRitonavir—313031010
LopinavirRitonavirToremifene17403205.4
GC376 (10 uM)EIDD-2801—25594100.03
K777Toremifene—25171.5
Tabuľka 4
Násobné zníženie počtu kópií FIPV vírusovej RNA pri kombinovanej terapii (cACT).
Očakávaný aditívny účinok reflektuje súčet násobného zníženia vírusovej RNA každej zlúčeniny použitej pri monoterapii (Tabuľka 3)
* Pokiaľ nie je uvedené inak, všetky zlúčeniny boli použité pri 10μM.
cACT/add – pomer redukcie titra FIPV pri kombinovanej terapii oproti súčtu násobkov redukcie titra pri monoterapii
Add – súčet násobkov redukcie titra pri monoterapii
Obrázok 6
Vybrané príklady násobného zníženia počtu kópií FIPV RNA pomocou kombinovanej terapie (cACT).
Stĺpce predstavujú priemerný násobný pokles troch jamiek liečených buniek CRFK v porovnaní so stredným násobným poklesom troch neliečených jamiek infikovaných FIPV. Všetky zlúčeniny boli testované pri 10μM, pokiaľ nie je uvedené inak.

Vzhľadom na výraznú anti-FIPV aktivitu GC-376, ako aj na jeho potenciálnu dostupnosť pre pokrok vo farmakokinetických štúdiách in vivo, klinických testoch a nádejnom použití v aplikácii cACT bola táto zlúčenina vybraná na sériu „vírusových RNA knock-down“ testov pri mono a kombinovanej terapii (obr. 7). Celkovo GC376 preukázal vynikajúcu anti-FIPV aktivitu pri 20μM tak pri monoterapii, ako aj pri kombinovanej terapii in vitro. K najvýraznejšiemu zníženiu FIPV RNA došlo v kombinácii GC376 pri 20μM s amodiaquinom pri 10μM. Pokus kombinujúci GC376 s amodiaquinom sa opakoval a oba výsledky sú uvedené pre porovnanie na obr. 7C.

Obrázok 7
GC376 antivírusová aktivita pri monoterapii a v kombinovanej terapii pri 10 a 20 μM

(A) Redukcia FIPV RNA kvantifikovaná pomocou RT-qPCR s použitím GC376 ako monoterapii pri 10 a 20 μM. Medzi týmito dvoma koncentráciami je významný rozdiel, pričom 20μM je lepšia ako 10μM. (nepárový t-test; p <0,0001).
(B) Kombinovaná in vitro terapia s použitím GC376 pri 10 μM.
(C) Kombinovaná in vitro terapia proti FIPV s použitím GC376 pri 20 μM.

Diskusia

Pretože v súčasnosti neexistuje účinná vakcína proti FIP, existuje silná klinická a celosvetová potreba účinných možností antivírusovej liečby pre mačky infikované FIPV. Testovali sme 89 zlúčenín, ktorých výsledkom je identifikácia 25 antivírusových látok s antivírusovou účinnosťou a silnými bezpečnostnými profilmi proti mačaciemu koronavírusu, FIPV. Identifikovali sme tiež kombinácie antivírusových látok (cACT), ktoré viedli k vyššej účinnosti alebo synergizmu oproti samotnej monoterapii. Obzvlášť zaujímavé bolo zistenie týkajúce sa použitia elbasviru, ktorý opakovane demonštroval vynikajúcu ochranu CRFK pred FIPV vyvolanom CPE pri koncentrácii nižšej ako 1 μM na základe viacerých testov (EC50 0,16 μM). V zásade sa však nezistil žiadny rozdiel v počte kópií vírusovej RNA medzi infikovanými bunkami liečenými elbasvirom alebo bez neho. Ďalšia vizuálna analýza buniek CRFK infikovaných FIPV, ktoré boli liečené elbasvirom, odhalila atypickú morfológiu buniek vo vzťahu k neinfikovaným bunkám, ktorá sa vyznačovala premenlivým zväčšením, zaoblením buniek a čiastočným odlúčením buniek (cytopatický účinok). Tieto „atypické bunky“ sa zriedka oddelili od kultivačnej doštičky a vo výsledku boli hodnoty absorbancie porovnateľné s neinfikovanými kontrolnými jamkami. Tento dichotomický výsledok medzi analýzou doštičky a vírusovým RNA knock-down testom naznačuje, že k antivírusovému účinku elbasviru dochádza po vírusovej replikácii a vo výsledku nemusí elbasvir chrániť bunky pred akumuláciou vírusovej RNA. Elbasvir sa používa na liečbu pacientov infikovaných vírusom hepatitídy C (HCV) a predpokladá sa, že je cielený na HCV NS5A proteín zabraňujúci replikácii a tiež na kompletizáciu viriónov [34]. Aj keď nie je pre FIPV identifikovaný homológ NS5A, je možné, že elbasvir vykazuje podobný antivírusový účinok tým, že zabraňuje kompletizácii viriónov FIPV bez blokovania syntézy vírusovej RNA v CRFK bunkách. Dodatočné vyhodnotenie liečených buniek CRFK infikovaných FIPV pomocou transmisnej elektrónovej mikroskopie môže objasniť účinok elbasviru na ochranu CRFK pred poškodením a smrťou spojenou s FIPV.

Ukázalo sa, že súčasné podávanie ritonaviru s lopinavirom významne zvyšuje plazmatické koncentrácie lopinaviru u potkanov, psov a ľudí [33]. Ritonavir je silný inhibítor CYP3A, ktorý je primárnym enzýmom zodpovedným za metabolizmus inhibítorov proteázy, a preto jeho súbežné podávanie s inými inhibítormi proteázy vedie k zvýšeným systémovým koncentráciám súčasne podávaného inhibítora proteázy, ako je lopinavir [38, 39]. Zvýšenie antivírusového účinku lopinaviru spojené s ritonavirom bolo v testoch eliminácie vírusovej RNA relatívne minimálne s iba 10-násobnou inhibíciou FIPV oproti aditívnemu účinku. Môže to byť výsledkom in vitro artefaktu testovania na mačacej obličkovej bunkovej línii (tj. CRFK bunkách), v ktorej chýba enzým CYP3, čo je enzým, ktorý sa typicky vyskytuje v miestach s vysokým metabolizmom inhibítora proteázy pri efekte prvého priechodu (tj. v enterocytoch a hepatocytoch) [39]. Tieto výsledky naznačujú, že samotné testy in vitro nemusia úplne predpovedať účinok antivírusových látok u mačiek infikovaných FIPV in vivo.

Grazoprevir, inhibítor serínovej proteázy NS3/4, sa používal v kombinácii s elbasvirom, inhibítorom NS5A, na liečbu pacientov infikovaných HCV (Zepatier, Merck) [40]. Tu sme preukázali, že grazoprevir má anti-FIPV aktivitu, keď sa používa ako monoterapia. Inhibítor cysteínovej proteázy K777/K11777 bol skúmaný kvôli svojej schopnosti blokovať vstup koronavírusu (MERS-CoV a SARS-CoV-1) a ebolavírusu a bolo zistené, že úplne inhibuje koronavírusovú infekciu, ale iba v cieľových bunkových líniách bez vírus aktivujúcich serínových proteáz. [41]. V prípade iných bunkových línií K777 inhiboval vstup koronavírusových buniek v kombinácii s inhibítorom serínovej proteázy [41]. Je možné, že obmedzená inhibícia produkcie FIPV RNA K777 by sa mohla zvýšiť, ak by sa kombinovala s inhibítorom serínovej proteázy.

Amodiaquine je antimalarické liečivo a patrí do triedy 4-aminochinolínových liečiv. Amodiaquine spolu s príbuznými 4-aminochinolínmi, ako sú chlorochin a hydroxychlorochin, bol pôvodne vyvinuý pre liečbu malárie [42], a podobne ako chlorochín a hydroxychlorochín oplýva rozsiahlym anatomickým distribučným objemom vrátane očí a mozgu [43–49]. Prenikanie antivírusových látok do CNS a/alebo očných kompartmentov je obzvlášť dôležité v prípade mačiek infikovaných FIPV s neurologickým a/alebo očným postihnutím. Zatiaľ čo niekoľko výskumov definovalo antivírusové vlastnosti chlorochínu a hydroxychlorochínu [28, 50, 51], antivírusová aktivita amodiaquinu sa skúmala aj s identifikáciou antivírusovej aktivity proti vírusu dengue, vírusu Ebola a ťažkej horúčke s vírusovým trombocytopénnym syndrómom (SFTS) [52–55]. Mechanizmus účinku amodiaquinu môže zahŕňať zvýšenie cytoplazmatického lyzozomálneho a/alebo endozomálneho pH, ktoré zabráni uvoľneniu životaschopných viriónov do cytoplazmy [56]. Vzhľadom na svoj jedinečný status triedy liečív a predpokladanú schopnosť prekonať hematoencefalickú bariéru [57] je amodiaquine sľubným kandidátom pre kombinovanú liečbu neurologických a/alebo okulárnych foriem FIP.

Toremiféncitrát, selektívny modulátor estrogénových receptorov (SERM), sa používa na liečbu metastatického karcinómu prsníka u ľudských pacientov. V poslednej dobe bol toremifén hodnotený z hľadiska jeho antivírusových vlastností a preukázal antikoravírusovú aktivitu proti zoonotickým koronavírusom, koronavírusom blízkovýchodného respiračného syndrómu (MERS-CoV) a SARS-CoV-1 [58]. Toremifén tiež preukázal aktivitu proti vírusu Ebola (EBOV) [59, 60]. Aj keď presný mechanizmus antivírusového pôsobenia nie je definovaný, zdá sa, že antivírusový účinok toremifénu proti EBOV spočíva v destabilizácii glykoproteínu EBOV [59].

Je zaujímavé, že GC376 preukázal pri kombinovanej terapii mätúce rozdiely medzi dávkovaním 10 μM a 20 μM . Pri kombinovanom použití pri 10 μM s inými zlúčeninami absentoval synergizmus a v niektorých prípadoch pokles antivírusového účinku v porovnaní s adititívnymi hodnotami v rozmedzí od 0,03 do 1,6 (tabuľka 4). Ak sa použil pri 20 μM, stále existovali prípady, keď kombinácia s inou zlúčeninou viedla k zníženému antivírusovému účinku v porovnaní s GC376 použitým ako monoterapia pri 20 μM. Oveľa viac variácií však pri kombináciách pri 20 μM vykazovalo násobok účinku oproti aditívnym hodnotám v rozmedzí od 0,13 do 76 (tabuľka 4). Konkrétnym príkladom je kontrast medzi GC376 pri 20 μM v porovnaní s GC376 pri 10 μM kombinovanom s amodiaquinom pri 10 μM. Prvý spôsobil najväčšiu inhibíciu vírusovej RNA, ako aj najväčší násobok aditívneho (synergického) účinku, zatiaľ čo druhý spôsobil takmer stratu synergizmu s hodnotou násobku aditívnej hodnoty 1,6.

Identifikácia účinných antivírusových stratégií pre liečbu mačiek infikovaných FIPV má translačné dôsledky pre prebiehajúcu pandémiu SARS-CoV-2. Infekcia FIPV u mačiek pripomína infekciu koronavírusmi u fretiek [61, 62] a porovnáva sa s patogenézou iných chronických chorôb závislých od makrofágov, ako je tuberkulóza [63]. Pretože sa klinické a patogénne podrobnosti infekcie SARS-CoV-2 u ľudí stále objavujú, zdá sa, že existuje určité prekrytie s FIPV v anatomickej distribúcii, klinických prejavoch a pravdepodobnej reakcii na určité antivírusové terapie. U mačiek je mačací enterický koronavírusový biotyp (FECV) obmedzený na zažívací trakt v dôsledku tropizmu enterocytov. Klinické príznaky u mačiek infikovaných FECV siahajú od mierneho gastrointestinálneho ochorenia (hnačka) až po absenciu príznakov. Mutovaný mačací biotyp koronavírusu FIPV získava makrofágový tropizmus a prednostne sa zameriava na serózne povrchy brušnej a hrudnej dutiny s podskupinou mačiek, ktoré demonštrujú postihnutie CNS alebo očí [7]. Podobne u pacientov s COVID-19 existujú správy o hnačkách a podskupine pacientov s postihnutím CNS [14]. Aj keď bol bunkový receptor pre SARS-CoV-2 identifikovaný ako ACE2 [64], bunkový receptor pre FIPV sérotypu I sa ešte musí určiť. Bunkový receptor pre menej klinicky relevantný FIPV sérotypu II bol identifikovaný ako mačacia aminopeptidázová peptidáza (fAPN) [4]. Štúdia využívajúca RNAseq na hodnotenie profilov génovej expresie buniek ascitu získaných z mačiek s FIP neidentifikovala expresiu ACE2, čo naznačuje, že ACE2 pravdepodobne nebude receptorom FIPV sérotypu I [63]. Je potrebné podrobnejšie preskúmanie identity receptora FIPV sérotypu I.

Doterajšie klinické úspechy s použitím GS-441524 alebo GC-376 u mačiek s experimentálnymi a prirodzene sa vyskytujúcimi FIP ukazujú, že je možné účinne liečiť FIP, avšak liečba suchých (granulomatóznych), neurologických a okulárnych FIP stále predstavuje výzvu. Inhibítor proteázy 3C-like proteázy, GC-376, sa javí ako relatívne účinný pri liečbe efúznej infekcie FIPV obmedzenej na telesné dutiny, ale môže byť menej účinný pri liečbe neurologických alebo okulárnych foriem ochorenia [24]. Tieto odlišné výsledky môžu byť výsledkom neúčinnej penetrácie hematoencefalickej a hematookulárnej bariéry, čo robí z GC-376 nádejného kandidáta na kombinovanú terapiu s antivírusovým liekom prenikajúcim do CNS.

Materiály a metódy

Inokulácia FIPV pre in vitro experimenty

Mačacie obličkové bunky Crandell-Reese (CRFK, ATCC) sa kultivovali v bankách T150 (Corning), naočkovali sa FIPV sérotypu II (WSU-79-1146, GenBank DQ010921) a množili sa v 50 ml Dulbeccovho modifikovaného Eagle média (DMEM) s 4,5 g/l glukózy (Corning) a 10% fetálneho hovädzieho séra (Gemini Biotec). Po 72 hodinách inkubácie pri 37°C bol zaznamenaný rozsiahly cytopatický účinok (CPE) a veľké plochy clearingu/oddeľovania buniek. Banky sa následne bleskovo zmrazili na -70°C počas 8 minút, krátko sa rozmrazili pri izbovej teplote a bunky a supernatant sa potom centrifugovali pri 1500 g počas 5 minút, po ktorých nasledoval druhý krok centrifugácie pri 4000 g počas 5 minút, aby sa izolovali bezbunkové vírusové objemy. Supernatant obsahujúci vírusový základ sa rozdelil na 0,5 a 1,0 ml alikvotné časti v 1,5 ml kryotubusoch (Nalgene) a archivoval sa pri -70°C. Po zmrazení sa jedna skúmavka nechala rozmrznúť a titer vírusu sa stanovil pomocou biologických testov (TCID50) a RT PCR metód v reálnom čase (nižšie).

Infekčná dávka dose-50 pre tkanivovú kultúru (TCID50) sa stanovila pomocou vírusového plaque testu. CRFK bunky sa pestovali na 96-jamkovej doštičke pre tkanivové kultúry (Genesee Scientific), kým bunky CRFK nedosahovali približne 75-85% konfluenciu. Sériové 10-násobné riedenia sa pripravili z FIPV zásobného roztoku a 200 μl vzoriek z každého riedenia sa pridalo do 10-jamkových replikátov. 72 hodín po infekcii sa bunky fixovali metanolom a zafarbili sa kryštálovou violeťou (Sigma-Aldrich). Jednotlivé jamky sa vizuálne hodnotili na vírusom indukovaný CPE, hodnotili sa ako CPE pozitívne alebo negatívne a TCID50 sa stanovila na základe rovnice log10TCID50 = [celkový počet # jamiek CPE pozitívny / # replikátov] + 0.5, aby reflektovali infekčné virióny na mililiter supernatantu [68].

Kvantifikácia FIPV pomocou qRT-PCR

Bezbunková vírusová RNA bola izolovaná z východiskového vírusu pomocou QIAamp Viral RNA Mini Kit (Qiagen) podľa pokynov výrobcu. Izolovaná RNA bola ošetrená DNázou (Turbo DNáza, Invitrogen) a následne reverzne transkribovaná pomocou súpravy High-Capacity RNA-to-CDNA (Applied Biosystems) podľa protokolov výrobcov. Počet kópií FIPV a mačacej GAPDH cDNA sa stanovil s použitím Real-Time PCR systému Applied Biosystems ‚QuantStudio 3 a PowerUp SYBR Green Master Mix podľa protokolu výrobcu pre 10 μL reakciu. Každá PCR reakcia sa uskutočňovala trikrát s vodným templátom ako negatívnou kontrolou a plazmidovou DNA ako pozitívnou kontrolou. Kontrolná reakcia vylučujúca reverznú transkriptázu bola zahrnutá do každej sady testov PCR v reálnom čase. Templáty cDNA sa amplifikovali pomocou FIPV forward primeru, 5’-GGAAGTTTAGATTTGATTTGGCAATGCTAG a FIP reverzného primeru, 5’-AACAATCACTAGATCCAGACGTTAGCT (terminálna časť génu FIPV 7b) [25]. PCR v reálnom čase pre mačací domáci gén GAPDH sa uskutočňovala súčasne s použitím primérov, 5 GAPDH, 5’-AAATTCCACGGCACAGTCAAG a 3 GAPDH, 5’-TGATGGGCTTTCCATTGATGA. Podmienky cyklovania pre FIPV aj GAPDH amplikóny boli nasledujúce: 50°C počas 2 minút, 95°C počas 2 minút, potom nasledovalo 40 cyklov pri teplote 95°C počas 15s, 58°C počas 30s, 72°C počas 1 minúty. Posledný krok obsahoval disociačnú krivku na vyhodnotenie špecifičnosti väzby priméru. Počet kópií FIPV a GAPDH bol vypočítaný na základe štandardných kriviek generovaných v našom laboratóriu. Kópie cIPNA FIPV stanovené pomocou RT PCR v reálnom čase sa normalizovali na 106 kópií mačacej GAPDH cDNA.

Vývoj anti-helikázových chemických fragmentov

Lieky skúmané a opísané v tejto štúdii boli už známe antivírusové látky. Naproti tomu bol helikázový enzým FIPV klonovaný, exprimovaný a použitý ako cieľ pre koronavírus a enzýmovo špecifickým vírusovým objavom. Cieľová sekvencia DNA AviTag-FIP Helicase-HisTag bola optimalizovaná a syntetizovaná. Syntetizovaná sekvencia bola klonovaná (Adeyemi Adedeji) do vektora pET30a s tagom Avi-His na expresiu proteínu v E. coli. Kmeň E. coli BL21 (DE3) sa transformoval rekombinantným plazmidom. Jedna kolónia sa naočkovala do 1 litra auto-indukovaného média obsahujúceho antibiotikum a kultúra sa inkubovala pri 37°C pri 200 ot./min.

Keď OD600 dosiahol asi 3, teplota bunkovej kultúry bola na 16 hodín zmenená na 15°C. Bunky sa zozbierali centrifugáciou. Bunkové pelety sa resuspendovali v lyzačnom pufri s následnou sonifikáciou. Zrazenina po centrifugácii sa rozpustila pomocou denaturačného činidla. Cieľový proteín sa získal jednostupňovým čistením na Ni kolóne. Cieľový proteín sa sterilizoval 0,22 um filtrom. Výťažok bol 7,2 mg pri 0,90 mg/ml a bol uložený v PBS, 10% glycerole, 0,5 mM L-arginíne, pH 7,4. Koncentrácia bola stanovená Bradfordovým proteínovým testom s BSA ako štandardom. Čistota proteínu a molekulová hmotnosť sa stanovili pomocou SDS-PAGE s potvrdením Western blot.

Skríning fragmentov povrchovej plazmónovej rezonancie (SPR) sa uskutočňoval na platforme ForteBio Pioneer FE SPR. Použil sa senzorový čip HisCap, ktorý obsahuje povrchovú matricu NTA. Kanály 1 a 3 boli naplnené 100uM NiCI2, nasledovalo injekčné podanie 50ug/ml FIP proteínu. Kanál 2 bol ponechaný bez bielkovín, rovnako ako NiCl2, ako referencia. Kanál 1 bol imobilizovaný na hustotu ~8000 RU, zatiaľ čo kanál 3 obsahoval približne 12000 RU. Bol použitý kanál 1. Pufrom použitým na imobilizáciu bol 10 mM HEPES, pH 7.4, 150mM NaCI a 0,1% Tween-20. Pre tento test sa pridal DMSO do konečnej koncentrácie 4%. Proprietárna knižnica zlúčenín sa zriedila v rovnakom tlmivom roztoku bez DMSO na konečnú koncentráciu DMSO 4% DMSO. Zlúčeniny z knižnice sa testovali pri koncentrácii 100 uM s použitím gradientovej injekčnej metódy OneStep. Nálezy boli vybrané na základe RU a kinetiky a použité pre bunkový skríning.

Vírusový plaque (doštičkový) test

Na skríning antivírusovej aktivity zlúčenín boli infikované bunky CRFK ošetrené zlúčeninami v šiestich jamkových replikátoch a porovnávané s jamkami pozitívnej kontroly (infikované bunky), negatívnymi kontrolami (neinfikované bunky) a kontrolami liečby (infikované bunky ošetrené známou účinnou antivírusovou zlúčeninou) súčasne na každej platni pre tkanivové kultúry. CRFK bunky sa pestovali na 96-jamkových platniach pre tkanivové kultúry (Genesee Scientific) obsahujúcich 200 ul kultivačného média. Pri ~75-85% konfluencii buniek bolo médium v ​​neinfikovaných kontrolných jamkách odsaté a nahradené 200 ul čerstvého média. Médium v ​​infikovaných jamkách bolo odsaté a nahradené médiom inokulovaným FIPV pri multiplicite infekcie (MOI) 0,004 infekčného viriónu na bunku. Doštička pre tkanivovú kultúru sa inkubovala 1 hodinu s periodickým jemným miešaním (manipulácie typu „číslo osem“) uskutočňovaným každých 15 minút, aby sa uľahčila interakcia vírus-bunka. Po 1 hodine po infekcii sa každá predpokladaná antivírusová zlúčenina pridala do šiestich jamiek infikovaných FIPV (na stanovenie antivírusovej účinnosti zlúčeniny) a šiestich neinfikovaných kontrolných jamiek (na skríning cytotoxicity zlúčeniny v bunkách CRFK). Všetky zlúčeniny boli pôvodne skrínované pri 10 μM, s výnimkou zlúčenín „chemického fragmentu“ dodávaných M. Olsenom (Midwestern University), ktoré boli hodnotené pri 50 μM. Doštičky s tkanivovými kultúrami sa inkubovali 72 hodín pri 37°C a potom sa zafixovali metanolom a zafarbili sa kryštálovou fialovou farbou. Doštičky sa skenovali na absorbanciu pri 620 nm pomocou čítačky doštičiek ELISA (FilterMax F3, Molecular Devices; Softmax Pro, Molecular Devices). Pre každú liečebnú podmienku sa zaznamenali jednotlivé hodnoty absorbancie jamky spolu s priemernou hodnotou absorbancie a strednou chybou priemeru pre 6 jamkové experimentálne replikáty.

Pre látky, ktoré preukázali antivírusovú účinnosť pri počiatočnom skríningu pri 10 alebo 50μM (chránené pred vírusom asociovaným CPE), sa EC50 stanovila vykonaním série progresívnych 2-násobných riedení zlúčenín vo vírusovom plaque teste. Na stanovenie EC50 sa bunky CRFK pestovali na 96-jamkových doštičkách pre tkanivové kultúry podobne ako v prípade antivírusového skríningového testu. Okrem neinfikovaných kontrolných jamiek boli všetky zostávajúce jamky infikované FIPV, ako je opísané vyššie. Séria dvojnásobného riedenia sa pohybovala od 20μM do 0μM a každá koncentrácia sa uskutočňovala v šiestich jamkových replikátoch. Počet krokov riedenia bol v rozmedzí od 6 do 14 a bol závislé od zlúčeniny. Šesť jamkových replikátov neinfikovaných buniek CRFK slúžilo ako kontrola pre normálne bunky CRFK; šesť replikátov CRFK buniek infikovaných FIPV slúžilo ako neošetrené kontrolné jamky infikované FIPV; a šesť jamkových replikátov FIPV infikovaných CRFK buniek ošetrených GS-441524 slúžilo ako kontrolné jamky na ochranu pred vírusom indukovanou bunkovou smrťou na základe publikovaných údajov týkajúcich sa účinnosti použitia GS-441524 in vitro v CRFK bunkách [26].

Platne s tkanivovými kultúrami sa inkubovali 72 hodín a potom sa zafixovali metanolom, zafarbili sa kryštálovou violeťou a pomocou čítačky doštičiek ELISA sa skenovala absorbancia pri 620 nm. Jednotlivé hodnoty absorbancie spolu s priemernou hodnotou absorbancie a štandardnou odchýlkou pre 6 jamkové experimentálne replikáty boli zaznamenané pre každú podmienku liečby. EC50 bola vypočítaná vynesením nelineárnej regresnej rovnice (krivka dávka-odpoveď) pomocou programu Prism 8 (GraphPad).

Vírusový RNA knock-down test

Na kvantifikáciu inhibície produkcie vírusovej RNA zlúčeninou sa použili testy v reálnom čase RT-PCR. CRFK bunky sa kultivovali na 6-jamkovej doštičke pre tkanivové kultúry (Genesee Biotek). Pri približne 75-85% splývaní buniek bolo kultivačné médium nahradené čerstvým médiom a bunky boli infikované FIPV sérotypu II pri MOI 0,2 (MOI na základe TCID50 biotestu/pfu). Doštičky sa inkubovali jednu hodinu s periodickým jemným trepaním každých 15 minút. Jamky infikované FIPV boli ošetrené jednou (monoterapia), dvoma alebo tromi (kombinovaná antikoravírusová terapia) antivírusovými zlúčeninami; každé experimentálne ošetrenie sa uskutočňovalo trikrát. Dávka zlúčeniny bola založená na EC50 zlúčenín a pohybovala sa od 0,001 do 20 μM. Pre každú experimentálnu sadu slúžili tri kultivačné jamky s FIPV-infikovanými a neošetrenými CRFK bunkami ako vírusom infikované kontroly. Infikované bunkové kultúry boli následne inkubované po dobu 24 hodín a celková RNA spojená s bunkami bola izolovaná pomocou mini súpravy PureLink ™ RNA (Invitrogen). RNA bola ošetrená DNAsou (TurboDNAse, Ambion), reverzne transkribovaná na cDNA pomocou súpravy High-Capacity RNA-to-cDNA Kit (Applied Biosystems) a cIPNA FIPV a mačacie GAPDH cDNA boli merané pomocou qRT-PCR v reálnom čase, ako je opísané vyššie . Násobné zníženie vírusového titra sa stanovilo delením normalizovaného priemerného počtu kópií FIPV RNA pre neošetrené bunky CRFK infikované FIPV na normalizovaný priemerný počet kópií FIPV RNA pre liečené bunky CRFK požadovanou zlúčeninou (zlúčeninami). Očakávaný aditívny účinok sa stanovil pridaním násobnej redukcie pre každú monoterapiu použitú v kombinácii. Zložený aditívny účinok sa určil vydelením predikovaného aditívneho účinku na hodnotu kombinovanej redukcie násobku pre konkrétnu kombinovanú liečbu.

Stanovenie bezpečnostných profilov cytotoxicity (CSP).

Cytotoxicita zlúčeniny v mačacích bunkách sa hodnotila pomocou komerčne dostupnej súpravy (CellTox Green Cytotoxicity Assay, Promega) podľa pokynov výrobcu. Neošetrené bunky CRFK sa použili ako negatívne kontroly a bunky sa ošetrili cytotoxickým roztokom poskytnutým výrobcom ako pozitívne kontroly toxicity. Stručne, okrem kontrolných jamiek boli bunky CRFK nanesené na 96-jamkové doštičky pre tkanivové kultúry (Genesee Scientific) v štyroch jamkových replikátoch s 5, 10, 25, 50 alebo 100 μM koncentráciami požadovanej zlúčeniny a boli inkubované po dobu 72 hodín. Po 72 hodinách sa na všetky jamky nanieslo farbivo viažuce sa na súpravu DNA, inkubované pri 37°C chránené pred svetlom po dobu 15 minút a intenzite fluorescencie pri 485-500 nm Ex/520-530 nm EM bola následne stanovená pomocou čítačky doštičiek (FilterMax F3, Molekulárne zariadenia; Softmax Pro, Molekulárne zariadenia). Predpokladalo sa, že cytotoxicita zlúčeniny v konkrétnej koncentrácii je úmerná intenzite fluorescencie na základe selektívnej penetrácie a väzby farbiva na DNA degenerovaných, apoptotických alebo nekrotických buniek. Rozsah cytotoxicity sa stanovil nastavením hodnoty fluorescencie pre bunky ošetrené reagentom pre pozitívnu kontrolu na 100% a neošetrené mačacie bunky ako 0% cytotoxicity. Priemerná hodnota fluorescencie pre štyri jamky obsahujúce každú koncentráciu zlúčeniny sa potom interpolovala ako percento (percento cytotoxicity) v rozmedzí od 0 do 100%.

Konflikt záujmov

Autori prehlasujú, že nedošlo k žiadnemu konfliktu záujmov.

Oceňujeme financovanie poskytované Winn Feline Foundation (MTW 17-020; MTW 19-026) a Kalifornskou univerzitou v Davise, Centre for Companion Animal Health (CCAH; 2018-92-F; 2018-94-FE) prostredníctvom darov určených pre výskum FIP viacerými individuálnymi darcami a organizáciami (SOCK FIP, Davis, CA) a nadáciami (fond Philip Raskin, Kansas City, KS).

Doplnkové informácie

Kompletný zoznam zlúčenín testovaných in vitro na aktivitu proti FIPV

Inhibítory nukleozidovej polymerázy

12x GS Nuc AnalogsNucleoside analogNPI
GS-441524 (China-sourced)Nucleoside analog AdenosineNPI
3-Deazaneplanocin A HydrochlorideNucleoside analog AdenosineNPI
AdefovirNucleoside analog AdenosineNPI
GalidesivirNucleoside analog AdenosineNPI
GS-441524 (Manufactured in China)Nucleoside analog AdenosineNPI
MK-0608Nucleoside analog AdenosineNPI
NITD008Nucleoside analog AdenosineNPI
DidanosineNucleoside analog AdenosineNPI
Tenofovir alafenamideNucleoside analog AdenosineNPI
Tenofovir disoproxil fumarateNucleoside analog AdenosineNPI
EIDD 1931Nucleoside analog Cytidine 
EIDD 2801Nucleoside analog Cytidine 
2′-C-methylcytidineNucleoside analog CytidineNPI
Gemcitabine HydrochlorideNucleoside analog CytidineNPI
2-C-methylguanosineNucleoside analog GuanosineNPI
7-methylguanosineNucleoside analog GuanosineNPI
EntecavirNucleoside analog GuanosineNPI
MizoribineNucleoside analog GuanosineNPI
RibavirinNucleoside analog GuanosineNPI
PSI-6206Nucleoside analog UridineNPI
6-AzauridineNucleoside analog UridineNPI
BalapiravirNucleoside analog CytidineNPI
SofosbuvirNucleoside analog UridineNPI
FavipiravirNucleoside analog PurineNPI
Celkom 36

Inhibítory proteázy

GrazoprevirNS3/4A protease inhibitorPI
RupintrivirRhinoviral 3CP inhibPI
LopinavirAntiretroviral PIPI
RitonavirAntiretroviral PIPI
NelfinavirAntiretroviral PIPI
Disulfiram (tetraethyliuram disulfide)Papain-like protease inhibPI
K777/K11777Cysteine protease inhibitorPI
TelaprevirNS3/4A protease inhibitorPI
Camostat mesylateSerine protease inhibitorPI
ParitaprevirSerine protease inhibitorPI
GC376Coronavirus protease inhibitorPI
Celkom 11

NS5A inhibítory

VelpatasvirNS5A InhibitorNS5A Inhibitor
Ravidasvir/PPI-668NS5A InhibitorNS5A Inhibitor
LedipasvirNS5A InhibitorNS5A Inhibitor
OmbitasvirNS5A InhibitorNS5A Inhibitor
PibrentasvirNS5A InhibitorNS5A Inhibitor
DaclatasvirNS5A InhibitorNS5A Inhibitor
ElbasvirNS5A InhibitorNS5A Inhibitor
Celkom 7

NNPI

DasabuvirNon-nucleoside polymerase inhibitorNNPI
Celkom 1

Iné

MonensinIonophoreIné
Phenazopyridine hydrochlorideCrystalline solidIné
Pyrvinium pamoate hydrateAndrogen receptor inhibitorIné
Toremifene citrateSelective estrogen receptor modulator Iné
AM580Retinobenzoic derivativeIné
HomoharringtonineTranslation elongation inhibIné
Amodiaquine4-aminoquinoloneIné
Celkom 7

Midwestern Chemical Fragments

F0472-0017Midwestern
F6190-0257Midwestern
F6279-0675Midwestern
F2167-1080Midwestern
F6190-0740Midwestern
F6438-2155Midwestern
F3411-5663Midwestern
F6233-0011Midwestern
F9995-2543Midwestern
F2124-0890Midwestern
F2711-2577Midwestern
F2130-0055Midwestern
F2493-3358Midwestern
F2459-0974Midwestern
F2124-0465Midwestern
F1899-2269Midwestern
F2185-1982Midwestern
F2189-0717Midwestern
F2147-0158Midwestern
F1371-0192Midwestern
F2156-0057Midwestern
F9995-2431Midwestern
F3349-0218Midwestern
F2156-0059Midwestern
F2156-0070Midwestern
F5856-0194Midwestern
F2147-0975Midwestern
Celkom 27

Literatúra

  1. Chang HW, de Groot RJ, Egberink HF, et al. Feline infectious peritonitis: Insights into feline coronavirus pathobiogenesis and epidemiology based on genetic analysis of the viral 3c gene. J Gen Virol 2010; 91: 415–420.CrossRefPubMedWeb of ScienceGoogle Scholar
  2. Pedersen NC, Liu H, Dodd KA, et al. Significance of coronavirus mutants in feces and diseased tissues of cats suffering from feline infectious peritonitis. Viruses 2009; 1: 166–184.CrossRefPubMedWeb of ScienceGoogle Scholar
  3. Vennema H, Poland A, Foley J, et al. Feline infectious peritonitis viruses arise by mutation from endemic feline enteric coronaviruses. Virology 1998; 243: 150–157.CrossRefPubMedWeb of ScienceGoogle Scholar
  4. Rottier PJM, Nakamura K, Schellen P, et al. Acquisition of Macrophage Tropism during the Pathogenesis of Feline Infectious Peritonitis Is Determined by Mutations in the Feline Coronavirus Spike Protein. J Virol 2005; 79: 14122–14130.Abstract/FREE Full TextGoogle Scholar
  5. Diaz JV., Poma R. Diagnosis and clinical signs of feline infectious peritonitis in the central nervous system. Can Vet J 2009; 50: 1091–1093.PubMedGoogle Scholar
  6. Foley JE, Lapointe JM, Koblik P, et al. Diagnostic features of clinical neurologic feline infectious peritonitis. J Vet Intern Med 1998; 12: 415–423.CrossRefPubMedGoogle Scholar
  7. Pedersen NC. An update on feline infectious peritonitis: Diagnostics and therapeutics. Vet J 2014; 201: 133–141.CrossRefPubMedGoogle Scholar
  8. Stiles J. Ocular manifestations of feline viral diseases. Vet J 2014; 201: 166–173.CrossRefPubMedGoogle Scholar
  9. Pedersen NC. A review of feline infectious peritonitis virus infection: 1963-2008. J Feline Med Surg 2009; 11: 225–258.CrossRefPubMedGoogle Scholar
  10. Hohdatsu T, Yamada M, Tominaga R, et al. Antibody-Dependent Enhancement of Feline Infectious Peritonitis Virus Infection in Feline Alveolar Macrophages and Human Monocyte Cell Line U937 by Serum of Cats Experimentally or Naturally Infected with Feline Coronavirus. J Vet Med Sci 1998; 60: 49–55.CrossRefPubMedGoogle Scholar
  11. Takano T, Yamada S, Doki T, et al. Pathogenesis of oral type I feline infectious peritonitis virus (FIPV) infection: Antibodydependent enhancement infection of cats with type I FIPV via the oral route. J Vet Med Sci 2019; 81: 911–915.CrossRefPubMedGoogle Scholar
  12. Vennema H, de Groot RJ, Harbour DA, et al. Early death after feline infectious peritonitis virus challenge due to recombinant vaccinia virus immunization. J Virol 1990; 64: 1407–1409.Abstract/FREE Full TextGoogle Scholar
  13. Fenner’s Veterinary Virology. 2017. Epub ahead of print 2017. DOI: 10.1016/c2013-0-06921-6.CrossRefGoogle Scholar
  14. Wei X, Wang X, Peng W, et al. The Lancet Respiratory Medicine Clinical characteristics of SARS-CoV-2 infected pneumonia with diarrhea. 4.Google Scholar
  15. Hosoda T, Sakamoto M, Shimizu H, et al. SARS-CoV-2 enterocolitis with persisting to excrete the virus for about two weeks after recovering from diarrhea: A case report. Infect Control Hosp Epidemiol 2020; 1–4.Google Scholar
  16. Hamming I, Timens W, Bulthuis MLC, et al. Tissue distribution of ACE2 protein, the functional receptor for SARS coronavirus. A first step in understanding SARS pathogenesis. 2004; 631–637.Google Scholar
  17. Zhang J, Wu Y, Wang R, et al. Bioinformatic analysis of reproductive system Bioinformatic analysis reveals that the reproductive system is potentially at risk from SARS-CoV-2. 2020; 1–15.Google Scholar
  18. Zheng YY, Ma YT, Zhang JY, et al. COVID-19 and the cardiovascular system. Nat Rev Cardiol. Epub ahead of print 2020. DOI: 10.1038/s41569-020-0360-5.CrossRefGoogle Scholar
  19. Chen L, Deng C, Chen X, et al. Ocular manifestations and clinical characteristics of 534 cases of COVID-19 in China: A cross-sectional study. medRxiv 2020; 2020.03.12.20034678.Google Scholar
  20. Mao L, Wang M, Chen S, et al. Neurological Manifestations of Hospitalized Patients with COVID-19 in Wuhan, China: a retrospective case series study. medRxiv 2020; 2020.02.22.20026500.Google Scholar
  21. Chen C, Zhou Y, Wang DW. SARS-CoV-2: a potential novel etiology of fulminant myocarditis. Herz 2020; 10–12.Google Scholar
  22. Li Y-C, Bai W-Z, Hashikawa T. The neuroinvasive potential of SARS-CoV2 may be at least partially responsible for the respiratory failure of COVID-19 patients. J Med Virol 2020; 24–27.Google Scholar
  23. Shi J, Wen Z, Zhong G, et al. Susceptibility of ferrets, cats, dogs, and other domesticated animals to SARS-coronavirus 2. Science. Epub ahead of print 2020. DOI: 10.1126/science.abb7015.Abstract/FREE Full TextGoogle Scholar
  24. Pedersen NC, Kim Y, Liu H, et al. Efficacy of a 3C-like protease inhibitor in treating various forms of acquired feline infectious peritonitis. J Feline Med Surg 2018; 20: 378–392.CrossRefGoogle Scholar
  25. Murphy BG, Perron M, Murakami E, et al. The nucleoside analog GS-441524 strongly inhibits feline infectious peritonitis (FIP) virus in tissue culture and experimental cat infection studies. Vet Microbiol 2018; 219: 226–233.Google Scholar
  26. Pedersen NC, Perron M, Bannasch M, et al. Efficacy and safety of the nucleoside analog GS-441524 for treatment of cats with naturally occurring feline infectious peritonitis. J Feline Med Surg 2019; 21: 271–281.Google Scholar
  27. Holshue ML, DeBolt C, Lindquist S, et al. First case of 2019 novel coronavirus in the United States. N Engl J Med 2020; 382: 929–936.CrossRefPubMedGoogle Scholar
  28. Wang M, Cao R, Zhang L, et al. Remdesivir and chloroquine effectively inhibit the recently emerged novel coronavirus (2019-nCoV) in vitro. Cell Res 2020; 30: 269–271.CrossRefPubMedGoogle Scholar
  29. Nakagawa F, May M, Phillips A. Life expectancy living with HIV: Recent estimates and future implications. Curr Opin Infect Dis 2013; 26: 17–25.CrossRefPubMedGoogle Scholar
  30. Simonetti FR, Kearney MF. Review: Influence of ART on HIV genetics. Current Opinion in HIV and AIDS. Epub ahead of print 2015. DOI: 10.1097/COH.0000000000000120.CrossRefGoogle Scholar
  31. Arts EJ, Hazuda DJ. HIV-1 antiretroviral drug therapy. Cold Spring Harb Perspect Med; 2. Epub ahead of print 2012. DOI: 10.1101/cshperspect.a007161.Abstract/FREE Full TextGoogle Scholar
  32. Kim Y, Liu H, Kankanamalage ACG. Reversal of the Progression of Fatal Coronavirus Infection in Cats by a Broad-Spectrum Coronavirus Protease Inhibitor. 2016; 1–18.Google Scholar
  33. Kumar GN, Jayanti VK, Johnson MK, et al. Metabolism and disposition of the HIV-1 protease inhibitor lopinavir (ABT-378) given in combination with ritonavir in rats, dogs, and humans. Pharm Res 2004; 21: 1622–1630.CrossRefPubMedWeb of ScienceGoogle Scholar
  34. Sulejmani N, Jafri SM, Gordon SC. Pharmacodynamics and pharmacokinetics of elbasvir and grazoprevir in the treatment of hepatitis C. Expert Opin Drug Metab Toxicol 2016; 12: 353–361.Google Scholar
  35. Combination Antiretroviral Therapy for HIV Infection – American Family Physician, https://www.aafp.org/afp/1998/0601/p2789.html (accessed 6 April 2020).Google Scholar
  36. Julg B. Atripla™ – HIV therapy in one pill. 2008; 4: 573–577.Google Scholar
  37. Clay PG, Taylor TAH, Glaros AG, et al. “One pill, once daily”: what clinicians need to know about Atripla™. 2008; 4: 291–302.Google Scholar
  38. Hill A, Van Der Lugt J, Sawyer W, et al. How much ritonavir is needed to boost protease inhibitors? Systematic review of 17 dose-ranging pharmacokinetic trials. Aids 2009; 23: 2237–2245.CrossRefPubMedWeb of ScienceGoogle Scholar
  39. A. H, G.R. G, R.J. B. Ritonavir: Clinical pharmacokinetics and interactions with other anti-HIV agents. Clin Pharmacokinet 1998; 35: 275–291.CrossRefPubMedWeb of ScienceGoogle Scholar
  40. Kwo P, Gane EJ, Peng C, et al. Effectiveness of Elbasvir and Grazoprevir Combination, With or Without Ribavirin, for Treatment-Experienced Patients With Chronic Hepatitis C Infection. Gastroenterology 2017; 152: 164–175.e4.Google Scholar
  41. Zhou Y, Vedantham P, Lu K, et al. Protease inhibitors targeting coronavirus and filovirus entry. Antiviral Res 2015; 116: 76–84.CrossRefPubMedGoogle Scholar
  42. Alessandro SD, Scaccabarozzi D, Signorini L, et al. The Use of Antimalarial Drugs against Viral Infection. 2020; 1–26.Google Scholar
  43. Rynes RI, Bernstein HN. Ophthalmologic safety profile of antimalarial drugs. In: Lupus. 1993. Epub ahead of print 1993. DOI: 10.1177/0961203393002001051.CrossRefGoogle Scholar
  44. Briceño E, Reyes S, Sotelo J. Therapy of glioblastoma multiforme improved by the antimutagenic chloroquine. Neurosurg Focus. Epub ahead of print 2003. DOI: 10.3171/foc.2003.14.2.4.CrossRefPubMedGoogle Scholar
  45. Ekong M, Igiri A, Ekanem T, et al. The effect of amodiaquine on some brain macromolecules of Wistar rats. Int J Biol Chem Sci. Epub ahead of print 2009. DOI: 10.4314/ijbcs.v2i4.39762.CrossRefGoogle Scholar
  46. Mackenzie AH. Pharmacologic actions of 4-aminoquinoline compounds. Am J Med. Epub ahead of print 1983. DOI: 10.1016/0002-9343(83)91264-0.CrossRefPubMedWeb of ScienceGoogle Scholar
  47. Kuroda K. Detection and distribution of chloroquine metabolites in human tissues. J Pharmacol Exp Ther.Google Scholar
  48. Maguire A, Kolb H. THE EFFECT OF A SYNTHETIC ANTIMALARIAL (AMODIAQUINE) ON THE RETINA. Br J Dermatol. Epub ahead of print 1964. DOI: 10.1111/j.1365-2133.1964.tb15487.x.CrossRefPubMedWeb of ScienceGoogle Scholar
  49. McAnally D, Siddiquee K, Gomaa A, et al. Repurposing antimalarial aminoquinolines and related compounds for treatment of retinal neovascularization. PLoS One. Epub ahead of print 2018. DOI: 10.1371/journal.pone.0202436.CrossRefGoogle Scholar
  50. Keyaerts E, Li S, Vijgen L, et al. Antiviral activity of chloroquine against human coronavirus OC43 infection in newborn mice. Antimicrob Agents Chemother 2009; 53: 3416–3421.Abstract/FREE Full TextGoogle Scholar
  51. Savarino A, Boelaert JR, Cassone A, et al. Effects of chloroquine on viral infections: An old drug against today’s diseases? Lancet Infect Dis 2003; 3: 722–727.CrossRefPubMedWeb of ScienceGoogle Scholar
  52. Azuma P, Massaquoi M, Job D, et al. Effect of Artesunate–Amodiaquine on Mortality Related to Ebola Virus Disease. 2016; 23–32.Google Scholar
  53. Boonyasuppayakorn S, Reichert ED, Manzano M, et al. HHS Public Access. 2015; 125–134.Google Scholar
  54. Baba M, Toyama M, Sakakibara N. Establishment of an antiviral assay system and identification of severe fever with thrombocytopenia syndrome virus inhibitors. 2017; 25: 83–89.Google Scholar
  55. Savarino A, Lucia MB, Rastrelli E, et al. Anti-HIV Effects of Chloroquine. JAIDS J Acquir Immune Defic Syndr. Epub ahead of print 2004. DOI: 10.1097/00126334-200403010-00002.CrossRefPubMedWeb of ScienceGoogle Scholar
  56. Al-bari AA. Targeting endosomal acidification by chloroquine analogs as a promising strategy for the treatment of emerging viral diseases. 2017; 5: 1–13.Google Scholar
  57. Terauchi M. Pharmacokinetics of selective estrogen receptor modulators(SERMs). Clin Calcium 2016; 26: 1571–1581.Google Scholar
  58. Agents A, Dyall J, Diseases I, et al. Repurposing of Clinically Developed Drugs for Treatment of Middle. Epub ahead of print 2014. DOI: 10.1128/AAC.03036-14.Abstract/FREE Full TextGoogle Scholar
  59. Zhao Y, Ren J, Harlos K, et al. virus glycoprotein. Nature 2016; 535: 169–172.CrossRefPubMedGoogle Scholar
  60. Dyall J, Nelson EA, Dewald LE, et al. Identification of Combinations of Approved Drugs With Synergistic Activity Against Ebola Virus in Cell Cultures. 2018; 22908: 672–678.Google Scholar
  61. Michimae Y, Mikami S, Okimoto K, et al. The First Case of Feline Infectious Peritonitis-like Pyogranuloma in a Ferret Infected by Coronavirus in Japan. 2010; 99–101.Google Scholar
  62. Ramis A, Amarilla SP. Coronavirus Infection in Ferrets : Antigen Distribution and Inflammatory Response. 2016; 53: 1180–1186.Google Scholar
  63. Watanabe R, Eckstrand C, Liu H, et al. Characterization of peritoneal cells from cats with experimentally ‑ induced feline infectious peritonitis (FIP) using RNA ‑ seq. Vet Res 2018; 1–15.Google Scholar
  64. Inhibitor P, Hoffmann M, Kleine-weber H, et al. SARS-CoV-2 Cell Entry Depends on ACE2 and TMPRSS2 and Is Blocked by a Clinically Proven Article SARS-CoV-2 Cell Entry Depends on ACE2 and TMPRSS2 and Is Blocked by a Clinically Proven Protease Inhibitor. 2020; 1–10.Google Scholar
  65. Zhang B, Zhou X, Zhu C, et al. Immune phenotyping based on neutrophil-to-lymphocyte ratio and IgG predicts disease severity and outcome for patients with COVID-19. medRxiv. Epub ahead of print 2020. DOI: 10.1101/2020.03.12.20035048.Abstract/FREE Full TextGoogle Scholar
  66. Zhao J, Yuan Q, Wang H, et al. Antibody Responses to SARS-CoV-2 in Patients of Novel Coronavirus Disease 2019. SSRN Electron J. Epub ahead of print 2020. DOI: 10.2139/ssrn.3546052.CrossRefGoogle Scholar
  67. Cao X. COVID-19: immunopathology and its implications for therapy. Nat Rev Immunol; 2019. Epub ahead of print 2020. DOI: 10.1038/s41577-020-0308-3.CrossRefPubMedGoogle Scholar
  68. Ramakrishnan MA. Determination of 50% endpoint titer using a simple formula. World J Virol 2016; 5: 85.CrossRefPubMedGoogle Scholar

Neurologická forma mačacej infekčnej peritonitídy a liečba pomocou GS-441524

1.6.2021
Niels C. Pedersen, DVM PhD
Pôvodný článok: The Neurological Form of Feline Infectious Peritonitis and GS-441524 treatment

Úvod

Neurologické postihnutie sa vyskytuje asi u 5–10% prípadov FIP. To sa môže v jednotlivých regiónoch líšiť, pretože na základe skúseností autora sa zdá, že turecké pouličné mačky vykazujú väčšiu prevalenciu. Vek nástupu je podobný ako u iných foriem FIP, pričom väčšina prípadov sa vyskytuje do 3 rokov.

Neurologická FIP sa považuje za formu suchej FIP a typické lézie suchej FIP v oblasti brucha, hrudníka alebo očí sa vyskytujú približne v polovici neurologických prípadov FIP. Neurologické príznaky sú viditeľné iba u asi 5% mačiek s prejavmi vlhkej FIP.1 Každopádne u mačiek došlo k významnému zvýšeniu výskytu neurologickej FIP buď počas liečby s GS-441524, alebo vo forme relapsov v období pozorovania po liečbe u mačiek, ktoré boli pôvodne liečené na neneurologickú FIP.

Klinické príznaky

Neurologická FIP sa vyskytuje v dvoch formách, primárnej a sekundárnej. Abnormálne neurologické príznaky sú prítomné u mačiek s primárnym ochorením. Bežné sú však aj všeobecné príznaky zlého zdravotného stavu, ako napríklad neprospievanie, chudnutie, letargia a nechutenstvo. Horúčka môže byť zjavná alebo skrytá. Asi polovica mačiek s primárnou neurologickou FIP bude mať tiež identifikovateľné lézie mimo CNS a typickými výsledkami krvných testov. Avšak mačky bez zjavných znakov poškodenia CNS budú mať často na paneli CBC a v sére normálne, alebo normálu sa blížiace hladiny.

Skoré neurologické príznaky, rozpoznateľné prospektívne alebo retrospektívne, zahŕňajú lízanie podlahy alebo stien, sporadické zášklby svalov a neurčité správanie a kognitívne abnormality. Anizokória je ďalším skorým znamením. Podozrenie na neurologickú FIP rastie, keď sú klinické príznaky funkčnejšie. Najskorším znakom je zvyčajne postupná strata koordinácie a rovnováhy (ataxia). Nechuť skákať hore alebo dole z vysokých miest je jedným z prvých prejavov nekoordinácie. Inkoordinácia je spočiatku najnápadnejšia u zadných nôh, ale rýchlo sa stáva všeobecnou. V niektorých prípadoch sa môžu vyskytnúť aj záchvaty typu grand mal alebo psychomotorického typu. Záchvaty typu grand mal sa prejavujú krátkou stratou vedomia, silnými rytmickými svalovými kŕčmi postihujúcimi celé telo. Psychomotorická epilepsia je spojená s rôznym stupňom vedomia a nekontrolovanými alebo čiastočne kontrolovanými pohybmi tela.

Mačky so sekundárnou neurologickou FIP sa vyznačujú príznakmi extra-intestinálneho ochorenia a postihnutie CNS sa objaví v neskoršej fáze choroby. Vyskytuje sa často počas antivírusovej liečby iných foriem FIP a je častou príčinou relapsu u mačiek liečených na iné formy FIP. Tieto relapsy sa zvyčajne vyskytujú v priebehu prvých 1-4 týždňov po úspešnej liečbe.

Postihnutie miechy je pri neurologickej FIP často prehliadané, hoci viac ako 50% mačiek so zápalovým ochorením miechy má FIP.2 Postihnutie miechy vedie k fekálnej a/alebo močovej inkontinencii rôznej závažnosti. Paralýza chvosta alebo zadných končatín sú tiež príznakmi ochorenia miechy. Postihnutie miechy pravdepodobne vedie k trvalým neurologickým deficitom a potom k ochoreniu mozgu.

Diagnostika

Náhly výskyt neurologických abnormalít u mačiek mladších ako 5-7 rokov je silným dôkazom FIP už iba ​​na základe samotnej pravdepodobnosti, pretože len málo ďalších chorôb bude mať v tejto vekovej skupine podobné príznaky. Avšak medzi veterinármi existuje tendencia zaradiť systémovú toxoplazmózu na svoj diagnostický zoznam vyššie, najmä keď sa pozorujú očné príznaky alebo príznaky postihnutia CNS. Systémová toxoplazmóza u mačiek je v porovnaní s FIP zriedkavým ochorením a často sa vyskytuje u imunokompromitovaných hostiteľov, vrátane hostiteľov s FIP. 15-17 Je to pochopiteľné, pretože mačky sú v prírode definitívnym hostiteľom Toxoplasma gondii a vyvinul sa u nich stav fakultatívnej symbiózy. Okrem toho je hlavným klinickým prejavom systémovej toxoplazmózy charakteristická pneumónia, niekedy spojená s hepatitídou, nekrózou pankreasu, myozitídou, myokarditídou a dermatitídou.3-8 Uveitída podobná FIP sa vyskytuje u približne 10% mačiek so systémovou toxoplazmózou, 4 a encefalitída je ešte menej častá.7,17 Diagnostický test na systémovú toxoplazmózu je založený na porovnaní titrov protilátok IgG a IgM pomocou postupu nepriamej fluorescenčnej protilátky (IFA). 3 Vysoké titre IgG pri absencii protilátok IgM naznačujú predchádzajúcu expozíciu na toxoplazmu, ktorá môže v populácií divých mačiek dosahovať až 50% .4 Prítomnosť vysokých titrov protilátok IgM je indikáciou systémového rozšírenia organizmu z čreva do iných tkanív a je jednou z požiadaviek na diagnostiku systémového ochorenia. Mnoho mačiek s očnými a neurologickými známkami je však nevhodne liečených na systémovú toxoplazmózu iba na základe vysokých titrov IgG.

Diagnóza typických foriem FIP sa zvyčajne určí spojením informácií o veku a pôvode mačky, historických a fyzických znakov (napr. zlý zdravotný stav, horúčka, brušné alebo hrudné výpotky, hmatateľné hmoty v brušných orgánoch) s určitými laboratórnymi abnormalitami v kompletnom krvnom obraze (anémia; vysoký počet bielych krviniek, nízky počet lymfocytov a vysoký počet neutrofilov), sérovom biochemickom paneli (vysoká celková bielkovina, vysoký globulín, nízky albumín a nízky pomer A:G), vyšetrenia výpotkov, ak sú prítomné (exsudát alebo modifikovaný exsudát, žltý odtieň) a určením pravdepodobnosti, že tieto zistenia možno najlepšie vysvetliť FIP. Definitívnu diagnózu je možné získať identifikáciou koronavírusových proteínov alebo RNA vo výpotkoch alebo vzorkách tkanív pomocou PCR alebo imunohistochémie. Je ale možné, že u mačiek, u ktorých sa vyvinie neurologická FIP počas liečby alebo po liečbe neneurologickej formy, budú mnohé alebo všetky tieto klinické znaky chýbať.

Diagnostika neurologickej FIP, najmä v primárnej forme, sa zvyčajne robí tromi spôsobmi: 1) zvážte všetky historické, klinické a laboratórne nálezy a odhadnite pravdepodobnosť, že sa jedná o FIP, 2) vyšetrite mozog pre charakteristické znaky FIP pomocou magnetickej rezonancie (MRI) a/alebo analýzou mozgovomiechového moku (CSF), 8,9 a 3) liečte na základe predpokladu, že ide o neurologickú FIP, a dúfajte v pozitívnu reakciu na antivírusovú liečbu.

Pri diagnostike neurologickej FIP sa stále viac uplatňuje magnetická rezonancia s vylepšením kontrastu. Dilatácia (hydrocefalus) jednej alebo viacerých mozgových komôr je častou léziou v mozgu.8,9 Podobné rozšírenia vo forme syringomyélie sa dajú pozorovať aj v mieche. Dilatácie sú sekundárne pri zápale okolitého ependymu. Ependyma zabezpečuje vylučovanie, cirkuláciu a udržiavanie homeostázy CSF. Preto je závažnosť sekundárneho obštrukčného hydrocefalu FIP úmerná stupňu ependymálneho zápalu a súvisiaceho zvýšenia kontrastu. Diskrétne lézie parenchýmu nie sú identifikované. MRI výrazne zvyšuje náklady na diagnostiku, anestézia zvyšuje riziko úmrtia u ťažko chorých mačiek a odborné znalosti a vybavenie nie sú vždy k dispozícii. Preto konečná diagnóza často spadá do reakcie na špecifickú antivírusovú liečbu. Liekom voľby pre neurologické prípady FIP je GS-441524.9,12

Analýza CSF je alternatívnym spôsobom kvantifikácie povahy a závažnosti zápalu v ependyme a mozgových blanách. Hladiny proteínu v CSF a počet buniek sú u mačiek s FIP zvýšené a často je možné získať vhodné vzorky pre detekciu infikovaných makrofágov pomocou IHC alebo PCR.10,11 Analýza CSF je spojená s malým rizikom z anestézie a punkcie ihly do cisterny magna.

Liečba

Neurologická FIP sa dá vyliečiť, ak sa cez hematoencefalickú bariéru prejde dostatočné množstvo antivivirotika a vírus nezískal rezistenciu voči lieku.9,12 Terénne testy s inhibítorom vírusovej proteázy GS376 boli prvými, ktoré preukázali, že neurologické príznaky možno významne potlačiť, ale infekcia sa nedá vyliečiť. Za dôvod sa považovala neschopnosť dosiahnuť dostatočne vysoké hladiny GC376 v CNS. Väčší úspech pri liečbe mačiek s neurologickou FIP sa dosiahol pomocou nukleozidového analógu a inhibítora transkripcie vírusovej RNA GS-441524.9,12 Ukázalo sa, že GS-441524 vstupuje do cerebrospinálnej tekutiny (CSF) v koncentráciách od 7-21% krvi, v závislosti od testovanej mačky. 13 Tieto rozdiely hematoencefalickej bariéry medzi mačkami sú pravdepodobným vysvetlením variabilných dávok GS-441524 od 4 do 10 mg/kg denne potrebných pre liečbu prirodzene sa vyskytujúcich prípadov neurologickej FIP.9,12

Súčasné počiatočné dávkovanie pre GS-441524 bolo na základe nedávnych zistení7 stanovené na 10 mg/kg denne subkutánnou cestou. Aj keď je možné liečiť niektoré mačky pri nižšom dávkovaní, 9,12 neexistuje jednoduchý spôsob, ako zmerať silu hematoencefalickej bariéry, takže sa používa najnižšie dávkovanie, ktoré bude mať liečivý efekt pre väčšinu mačiek. Úspešnosť liečby sa meria tak zlepšením klinických príznakov, ako aj zlepšením kritických abnormálnych hodnôt krvných testov. Prírastok hmotnosti a kvalita srsti sú taktiež dôležité kvalitatívne znaky, ktoré je potrebné pozorovať. Sekvenčné analýzy MRI a CSF poskytnú priamejšie dôkazy o reakcii na liečbu,9 ale vo väčšine prípadov sú nepraktické.

Zlepšenie celkového zdravotného stavu a neurologických príznakov sa zvyčajne prejavia do 24-48 hodín a väčšina mačiek predurčených k úplnému zotaveniu sa vráti do normálneho stavu za 4-6 týždňov. Významná časť mačiek však bude reagovať pomalšie a vyžaduje si prehodnocovanie ich klinického stavu a stavu krvných testov každé 4 týždne. Spomalenie priebehu liečby, buď klinicky, alebo vo forme zvratu v počiatočných abnormalitách krvného testu, si bude vyžadovať zvýšenie dávky lieku od +2 do +5 mg/kg denne.9,12

Ukončenie liečby, ktoré je zvyčajne po 84 dňoch, nie je vždy ľahké potvrdiť. Typické abnormality v krvných testoch, ktoré sa používajú pri väčšine ostatných foriem FIP, sa buď nevyskytujú v čase diagnózy, alebo sa vrátia do normálu pred ukončením liečby. Trvalé neurologické abnormality môžu pretrvávať aj po vyliečení infekcie a sťažujú tak klinické vyhodnotenie. Bez analýzy pomocou magnetickej rezonancie a/alebo mozgovomiechového moku, ktoré by potvrdili, či choroba už pominula, zostáva jedinou možnosťou ukončiť liečbu a dúfať, že k relapsu nedôjde.

Komplikácie neurologickej FIP

Relapsy u mačiek liečených na neurologickú FIP sa zvyčajne vyskytujú v priebehu niekoľkých dní po ukončení liečby a sú spôsobené buď neprimeraným dávkovaním a/alebo získaním liekovej rezistencie. Výskyt relapsov sa javí o niečo vyšší ako po liečbe foriem FIP bez postihnutia CNS. Poddávkovanie môže byť výsledkom silnejšej hematoencefalickej bariéry u niektorých mačiek v porovnaní s inými, nekvalitného antivírusového lieku alebo nesprávneho výpočtu dávky. Je však bežné, že sa mačky pri opakovanej liečbe vyliečia, pokiaľ nedošlo k liekovej rezistencii.

Získanie liekovej rezistencie je dobre známe u antivírusových liekov používaných u ľudí na choroby ako HIV/AIDS. Bola zaznamenaná aj u GC37611,14 aj GS-441524 u mačiek.12 Rezistencia na liečivo sa môže vyskytnúť mutáciami buď v pôvodnom FECV, alebo v jeho mutantnom biotype FIP v prírode14, a prejavovať sa nedostatočnou počiatočnou reakciou na liečbu, ale nie je to bežný jav.12 Rezistencia sa pravdepodobnejšie vyskytne počas liečby a dochádza k nej jednak chronickým vystaveniu liečivu, jednak nižšími sub-inhibičnými hladinami liečiva. Rezistencia na liek je zvyčajne čiastočná a dá sa často prekonať zvýšením dávky. Lieková rezistencia sa môže časom časom zhoršiť, a ďalšie zvyšovanie dávkovania už neprinesie žiadny efekt.

Mačky s neurologickou FIP môžu po ukončení liečby vykazovať zvyškové poškodenie mozgu a/alebo miechy a trvalé následky. Medzi postihnutia patrí rôzny stupeň nekoordinácie, zmeny správania a demencia. Najproblematickejšie následky sú spojené s postihnutím miechy. Miecha je uzavretá v kostnej trubici, ktorá neumožňuje veľkú expanziu v prípade zápalu alebo nejakej formy syringomyélie. Postihnutie miechy pri FIP sa často prejavuje rôznymi stupňami fekálnej a/alebo močovej inkontinencie. Pozoruje sa tiež ochrnutie zadných končatín a chvosta, ale je to menej časté. Bohužiaľ, tieto klinické abnormality sú často trvalé, najmä ak sa neurologické ochorenie nelieči dlhší čas.

Jedným z najbežnejších negatívnych výsledkov antivírusovej liečby u mačiek s neurologickou FIP je nedosiahnutie vyliečenia, aj keď pokračovanie v liečbe vysokými dávkami stále umožňuje udržateľnú kvalitu života (t.j. riadenie príznakov ochorenia bez vyliečenia). Táto situácia naznačuje, že inhibícia replikácie vírusu antivírusovými liekmi nemusí byť dostatočná pre vyliečenie infekcie, a že je tiež potrebná účinná imunitná odpoveď. Tento fenomén „liečby bez vyliečenia“ viedol v mnohých prípadoch mnohých majiteľov k tomu, aby v liečbe za každú cenu pokračovali aj po dobu viac ako jedného roka. Tiež to viedlo k mnohým experimentom s ultravysokými dávkami GS441524 (>15 mg/kg denne), rozdelenými dávkami, prechodom z injekcií na perorálnu liečbu, súčasnou perorálnou a injekčnou liečbou, kombinovanou antivírusovou liečbou (napr. GS-441424 plus GC376) a podporou antivírusovej liečby vysokými dávkami kortikosteroidov a iných imunosupresív. Príležitostne sa vyžaduje liečba takýmito spôsobmi liečby, ale výsledok bol pre väčšinu týchto mačiek nepriaznivý.

Existujú nepriame dôkazy o tom, že imunita hostiteľa voči FIP je rozdelená medzi CNS a ostatné časti tela. Výskyt postihnutia CNS sa zdá byť zvýšený, keď vďaka GS-441524 dôjde k inhibícii infekcie mimo CNS. Zdá sa preto, že aktívne ochorenie mimo CNS má inhibičný účinok na ochorenie v CNS. Mačky s čistým neurologickým ochorením často nevykazujú abnormálne hodnoty krvných testov na paneli CBC ani v sére, a to ani pri významných zápalových zmenách v mozgovomiechovom moku.8 Mačky s neurologickou FIP majú v porovnaní s inými formami FIP často najvyššie sérum, teda najvyššie hodnoty titra protilátok v CSF.8 To všetko sú dôkazy o „kompartmentalizácii“ infekcie na jednej alebo druhej strane hematoencefalickej bariéry.

Referencie

  1. Pedersen NC. 2009. A review of feline infectious peritonitis virus infection: 1963-2008. J Feline Med Surg 11:225-58.
  2. Marioni-Henry K. Feline spinal cord diseases. Vet Clin No Am Small Anim Pract. 2010;40:1011–1028.
  3. Pedersen NC. Toxoplasmosis. In: Feline Infectious Diseases. American Veterinary Publications, Inc., Goleta, CA, USA, 1988, pp 372-380.
  4. Petrak M, Carpenter J. Feline toxoplasmosis. J Am Vet Assoc. 1965; 146:728734. 
  5. Jokelainen P, Simola O, Rantanen E, Nareaho A, Lohi H, Sukura A. Feline toxoplasmosis in Finland: Cross-sectional epidemiological study and case series study. J Vet Diagn Invest. 2012; 24:1115–1124.
  6. Henriksen P, Dietz HH, Henriksen SA. Fatal toxoplasmosis in five cats. Vet Parasitol. 1994;55:15-20.
  7. Holzworth J. Encephalitic toxoplasmosis in a cat. J Am Vet Assoc. 1954; 124:313-316.
  8. Foley JE, Lapointe JM, Koblik P, Poland A, Pedersen NC Diagnostic features of clinical neurologic feline infectious peritonitis. J Vet Intern Med. 1998;12:415-423.
  9. Dickinson PJ, Bannasch M, Thomasy SM, Murthy VD, Vernau KM, Liepnieks M, Montgomery E, Knickelbein KE, Murphy B, Pedersen NC. Antiviral treatment using the adenosine nucleoside analogue GS‐441524 in cats with clinically diagnosed neurological feline infectious peritonitis. J Vet Intern Med. 2020; 34:1587–1593.
  10. Ives EJ, Vanhaesebrouck AE, Cian F. 2013. Immunocytochemical demonstration of feline infectious peritonitis virus within cerebrospinal fluid macrophages. J Feline Med Surg. 2013;15:1149–1153. 
  11. Pedersen NC, Kim Y, Liu H, Galasiti Kankanamalage AC, Eckstrand C, Groutas WC, Bannasch M, Meadows JM, Chang KO. Efficacy of a 3C-like protease inhibitor in treating various forms of acquired feline infectious peritonitis. J Feline Med Surg. 2018;20:378-392.
  12. Pedersen NC, Perron M, Bannasch M, et al. Efficacy and safety of the nucleoside analog GS-441524 for treatment of cats with naturally occurring feline infectious peritonitis. J Feline Med Surg. 2019;21:271-281. 
  13. Murphy BG, Perron M, Murakami E, et al. The nucleoside analog GS-441524 strongly inhibits feline infectious peritonitis (FIP) virus in tissue culture and experimental cat infection studies. Vet Microbiol. 2018;219:226-233. 
  14. Perera KD, Rathnayake AD, Liu H, Pedersen NC, Groutas WC, Chang KO, Kim Y. Characterization of amino acid substitutions in feline coronavirus 3C-like protease from a cat with feline infectious peritonitis treated with a protease inhibitor. Vet Microbiol. 2019;237:108398. 
  15. Ward, B.C. and Pedersen, N.C.:  Infectious Peritonitis in Cats.  J Am Vet Med.  1969;154:26-35.  
  16. Toomey JM, Carlisle-Nowak MM, Barr SC, Lopez JW, French TW, Scott FW, Hoose W, Pizano S, Dubey JP. Concurrent toxoplasmosis and feline infectious peritonitis in a cat. J Am Anim Hosp Assoc. 1995;31:425-428.
  17. Zandonà L, Brunetta R, Zanardello C, Vascellari M, Persico L, Mazzolini E. Cerebral toxoplasmosis in a cat with feline leukemia and feline infectious peritonitis viral infections. Can Vet J. 2018;59:860-862

Rýchla liečba ťažkej FIP pomocou prírodných produktov

5.4.2021
Yue Zhang, Yuanfeng Zhang, Lili Zhu, Fang Lu, Xin Du, Xin Zhao, Tao Lu
Pôvodný článok: Rapid Resolution of severe feline infectious peritonitis using natural products

Abstrakt

Toto je prvá správa o úspešnej liečbe závažného prípadu infekčnej peritonitídy mačiek (FIP) pomocou kapsuly Lianhuaqingwen (LH), čínskeho lieku na báze prírodných produktov, ktorá bola použitá i na liečbu Covid-19. Ročnej mačke diagnostikovali FIP – prítomné silné ascity, afágia, zápaly, ťažkosti s dýchaním a chudnutie. Po 22 dňoch liečby kapsulami LH sa všetky ukazovatele mačky vrátili do normálu a ascites postupne zmizli. Táto kazuistika je prvým popisom klinického zotavenia mačky so systémovou infekciou FCoV s použitím kapsúl LH.

KĽÚČOVÉ SLOVÁ: koronavírus, zápal, mačacia infekčná peritonitída, FIP, prírodné produkty, TCM

Základné fakty

Mačací koronavírus (FCoV), RNA alfa koronavírus, je vysoko infekčný enterický vírus, ktorý je z epidemiologického hľadiska členom rodiny Coronaviridae z radu Nidovirales [1,2], a môže infikovať mačky všetkých vekových skupín. Väčšina prípadov sa vyskytuje u mačiek vo veku 1-2 rokov a starších ako 11 rokov. Môže dlho číhať v črevách a spôsobiť mačaciu infekčnú peritonitídu (FIP) v oslabenom imunitnom alebo stresovom stave [3], ktorá je pre mačky známa ako „nevyliečiteľné ochorenie“ s takmer 100% úmrtnosťou.

Aj keď už bola publikovaná liečba FIP pomocou nových terapií [4], je potrebné ďalšie skúmanie účinnosti a bezpečnosti širokospektrálnych antivírusových liekov zameraných na FCoV. GS441524 predstavuje veľký prísľub pri liečbe mačiek s FIP [5], ale v súčasnosti nie je schválený FDA. A čo viac, náklady na liečbu FIP stoja 5000 až 9000 dolárov, čo pre väčšinu bežných rodín predstavuje veľkú finančnú záťaž. Kapsula LH, jeden z prírodných produktov TCM (Tradičnej čínskej medicíny), bola vyrobená za učelom inhibície replikácie SARS-CoV-2 [6]. LH kapsula uplatňuje svoju protichrípkovú aktivitu reguláciou imunitnej odpovede za účelom ovplyvnenia vírusových i hostiteľských reakcií [7]. Kapsula LH bola schválená Národnou zdravotníckou komisiou pre liečbu Covid-19, prospektívna randomizovaná štúdia zahŕňajúca 284 pacientov uskutočňovaná v multicentrickom prostredí naznačuje, že liečba kapsulami LH počas 14 dní výrazne zlepšila mieru ústupu príznakov [8].

Prípadová štúdia

„Big Tangerine“ je jednoročný kastrovaný kocúr čínskej mačky domácej (Felis catus) z domácnosti štyroch mačiek (2 Felis catus, 2 Britské krátkosrsté). U „Big Tangerine“ sa objavila strata chuti k jedlu a chudnutie trvajúce niekoľko týždňov. Ostatné mačky nevykazovali žiadne známky ochorenia. 15. novembra 2020 bol kocúr prevezený na kliniku Guaiguai Pet Hospital (Tianjin, Čína). Abdominocentéza ukázala veľké množstvo ascitu. FCoV sa detegoval pomocou RT-PCR v ascite, a tak bola diagnostikovaná FIP. Medzi príznakmi boli afágia (neschopnosť prehĺtať), hnačka, brušná distenzia (ascites), letargia, chudnutie a ťažkosti s dýchaním (Obrázok 1)

Obrázok 1:
Telesná hmotnosť mačky pred, počas a po zotavení z FIP a časová os. Graficky znázornená hmotnosť mačky: Deň 0 predstavuje diagnostiku FIP na klinike. Liečba LH sa uskutočňovala medzi 10 až 31. dňom. Mačka počas liečby LH stratila 1,5 kg hmotnosti (1. až 15. deň). Po návrate tela do normálu sa hmotnosť mačky rýchlo zvyšovala a neustále narastala i po ukončení liečby, až kým sa neustálila okolo 7,2 kg.

RT-PCR ascitu ukázala vysokú nalož FCoV (Ct hodnota 21,73). Výsledky laboratórnych testov ukázali zvýšené hladiny bielych krviniek (WBC) a neutrofilných granulocytov (Neu), čo naznačuje závažný zápal (tabuľka 1). Okrem toho došlo k zmene imunitnej reakcie: hladina lymfocytov (Lym%) sa významne znížila, čo naznačuje vírusom spôsobené vyčerpanie lymfocytov. Vzhľadom na hnačky a dýchacie ťažkosti mačky sa testoval SAA (marker zápalu a poškodenia tkaniva) (obr. 2A). Pacient dostal vrámci podpornej terapie fyziologický roztok a bielkoviny. Vzhľadom na klinický stav veterinár odporúčal pre mačku eutanáziu alebo experimentálny liek GS-441524. Vzhľadom na vysokú cenu liečby GS-441524 sa majitelia mačky rozhodli hľadať iné možnosti terapie.

NázovDeň 0Deň 30Referenčný rozsahJednotky
Leukocyty (WBC)44.813.855.5-19.510^9/L
Neutrofilné granulocyty (Neu%)94.176.238-80%
Lymfocyty (Lym%)2.217.212-45%
Monocyty (Mon%)2.32.61.00-8.00%
Eosinofily (Eos%)1.43.91.00-11.00%
Basofily (Bas%)00.10.00-1.20%
Neutrofilné granulocyty (Neu#)42.1610.563.12-12.5810^9/L
Lymfocyty (LYM#)0.982.380.73-7.8610^9/L
Monocyty (Mon#)1.040.360.07-1.3610^9/L
Eosinofily (Eos#)0.620.540.06-1.9310^9/L
Basofily (Bas#)00.010.00-0.1210^9/L
Erytrocyty (RBC)5.837.234.62-10.2010^12/L
Hemoglobín (HGB)8511785.0-153.0g/L
Hematokrit (HCT)24.834.626.00-47.00%
Stredný objem erytrocytov (MCV)42.547.938.00-54.00fL
Stredné množstvo hemoglobínu v erytrocyte (MCH)14.616.111.89-18.00pg
Stredná koncentrácia hemoglobínu v erytrocytoch (MCHC)342337290.0-360.0g/L
Šírka distribúcie erytrocytov – variačný koeficient (RDW-CV)20.6166.50-23.00%
Šírka distribúcie erytrocytov – štandardná odchýlka (RDW-SD)40.535.519.30-43.10fL
Trombocyty (PLT)187333100.0-518.010^9/L
Stredný objem trombocytov (MPV)1111.79.90-16.30fL
Šírka distribúcie trombocytov (PDW)10.214.712.00-17.50 
Doštičkový hematokrit (PTC)0.210.390.09-0.70%
Tabuľka 1. Laboratórne údaje týkajúce sa monitorovania liečby FIP

Opatrovateľ mačky hľadal pomoc v tradičnej čínskej medicíne. Vzhľadom na infekciu mačacím koronavírusom a dýchacie ťažkosti mu doporučili kapsulu LH, ktorá bola predpisovaná na liečbu chorôb dýchacieho systému a schválená Národnou komisiou pre zdravie zvierat na liečbu covid-19. FCoV a SARS-CoV-2 zdieľajú čiastočne identitcké sekvencie RNA, preto je pravdepodobné, že antivirotiká zamerané na SARS-CoV-2 budú účinné aj proti FCoV.

Obrázok 2. A,B,C. Hodnota SAA v deň 0 je 21,93 mg/l <0,5 mg/l v deň 30. D, Opuch brucha a ascites v deň 0. E, ascites zmizol v deň 21.

17. novembra 2020 začal „Big Tangerine“ dostávať kapsule LH (Tabuľka 2) trikrát denne 4 kapsuly (0,35 g na kapsulu) v kombinácii s antipyretikami; neboli pozorované žiadne nežiadúce účinky. O 24 hodín neskôr (18. novembra, 1. deň) došlo k zmierneniu dýchavičnosti. V tom čase dostával tekutú stravu pre svoju pokračujúcu anorexiu a hnačky. 48 hodín po užití lieku (19. novembra, 2. deň) bol stav pacienta do značnej miery stabilizovaný a objavila sa prvá mäkká stolica; zlepšil sa aj jeho duševný stav. Dokázal si sadnúť, olizovať si srsť, kým pred pár dňami ešte ležal na zemi a lapal po dychu. 3 dni po zahájení liečby (20. novembra) začal samostatne jesť (aj keď v malom množstve). Počas nasledujúcich 7 dní liečby sa jeho chuť do jedla zlepšila a výpotok sa začal zmenšovať. Počas tejto doby mal mäkkú stolicu. Začiatkom decembra bol kocúr podrobený palpačnému vyšetreniu, ktoré ukázalo, že výpotok takmer úplne zmizol. Ako je znázornené na obrázku 1, so zmiznutím ascitu sa odhadovalo, že je asi o 1,5 kg ľahší, čo bola najnižšia hmotnosť počas celej liečby. 2. decembra všetky príznaky ustúpili. Kocúr začal behať a hrať sa s ostatnými mačkami.

IngredienciaKomponent%
Forsythia suspensa (Zlatovka previsnutá)Sušený plod12.7
Lonicera japonica (Zemolez japonský)Sušený kvetný púčik alebo kvet12.7
Ephedra sinica (Chvojník čínsky)Sušená bylinná stonka4.2
Isatis indigotica (Boryt barvířský)Sušený koreň12.7
Pogostemon cablin (Pačuli všeobecná)Sušená nadzemná časť4.2
Rheum palmatum (Rebarbora dlanitá)Sušený koreň a oddenka2.5
Glycyrrhiza uralensis (Sladovka uralská)Sušený koreň a oddenka4.2
Dryopteris crassirhizomaSušené oddenky a lístky12.7
Rhodiola crenulata (Rozchodnica)Sušený koreň a oddenka4.2
Houttuynia cordata (Hutínia)Sušená nadzemná časť12.7
Prunus sibirica (Marhuľa sibírska)Sušené zrelé semeno4.2
gypsumCaSO4·2H2O12.7
1-mentholC10H20O0.4
Tabuľka 2. Zloženie kapsuly (granuly) Lianhuaqingwen
* Kapsuly LH boli vyrobené na základe liekopisu Čínskej ľudovej republiky.

Výsledok a následné kroky

Pacient pokračoval v užívaní kapsúl LH každý deň až do 9. decembra. Liečebné obdobie trvalo 3 týždne a príznaky sa po vysadení lieku nevrátili. 3. januára bol vyšetrený na klinike pre domáce zvieratá v Guaiguai a jeho krvný obraz a hladina SAA už boli v normálnom rozmedzí, okrem celkového proteínu (8,2 g/dl, normálne 5,4 až 8,2) a močoviny (42 mg/dl, normálne 10-30). (tabuľka 3 a obrázok. 2). Vzorky boli následne testované pomocou FCoV RT-PCR s negatívnym výsledkom, čo znamená, že vírusová nálož FCoV bola nižšia ako limit detekcie. Do predloženia správy (17. marca) sa už príznaky FIP neopakovali.

NázovDeň 30Referenčný rozsahJednotky
Albumín ALB42.2-4.0g/dL
Alkalická fosfatáza ALP3810-90U/L
Alanínaminotransferáza ALT6020-100U/L
Amyláza AMY1082300-1100U/L
Celkový bilirubín TBIL0.50.1-0.6mg/dL
Urea BUN4210.0-30.0mg/dL
Vápnik CA11.78.0-11.8mg/dL
Fosfor PHOS4.53.4-8.5mg/dL
Kreatinín CRE1.50.3-2.1mg/dL
Glukóza GLU10170-150mg/dL
NA+146142-164mmol/L
K+43.7-5.8mmol/L
Celková bielkovina TP8.25.4-8.2g/dL
Globulín GLOB4.21.5-5.7g/dL
Tabuľka 3: Laboratórne hodnoty po liečbe FIP

Diskusia

FIP je smrteľné ochorenie u mačiek spôsobené FCoV, ktorý číha v črevnom systéme. FIP je stále terminálne ochorenie s premenlivou dobou úmrtia, viac ako 95% mačiek mačiek uhynulo niekoľko dní až mesiacov po stanovení diagnózy [9]. Príznaky FIP u mačiek majú dve formy: suchú a vlhkú[10]. Najvýraznejším príznakom vlhkej FIP je výpotok v brušnej a hrudnej dutine [11]. Na zmiernenie príznakov sú používané glukokortikoidy, ako je prednizolón. Po diagnostikovaní ascites FIP, veterinárny lekár možno odporučí eutanáziu, pretože existuje len málo prípadov úspešnej liečby.

V súčasnosti existuje niekoľko účinných terapií. Napríklad nedávno bola publikovaná úspešná liečba FIP pomocou GS441524 [12], GC376 [13] alebo perorálneho analógu adenozínového nukleozidu [14]. GS441524 v kombinácii s antibiotickou liečbou, odporúčaný mnohými veterinárnymi lekármi, preukázal dobrý terapeutický účinok. GS441524 je prekurzor remdesiviru, ktorý sa používal pri liečbe COVID-19. Doba liečby liekom GS441524 trvá 1-3 mesiace, čo môže v Číne znamenať približne 5000 až 9000 dolárov. Bohužiaľ, kvôli cene a dostupnosti (GS441524 ešte nie je oficiálne schálený), sa veľa majiteľov mačiek vzdáva možnosti tejto osvedčenej a účinnej liečby.

V tomto prípade sa veterinár obával, že bez použitia GS441524 mačka neprežije ani týždeň. Majitelia mačky dúfali, že nájdu inú terapiu. LH kapsula, čínsky patentový liek zložený z 13 bylín, je bežne používaný širokospektrálny antivírusový liek vyvinutý na zíklade tradičnej čínskej medicíny [15]. Používa sa na liečbu série chrípkových vírusov, ako je vírusová nádcha, zápal pľúc a pod. [16, 17] Farmakologické a klinické štúdie preukázali, že môže významne zmierniť zápalovú reakciu inhibíciou replikácie vírusu a znížením uvoľňovania cytokínov z hostiteľských buniek. [17]. Je tiež odporúčaný ako jeden z podporných liekov pri liečbe COVID-19 [6, 18, 19]. Preto sme sa pokúsili použiť tento liek na zmiernenie zápalovej reakcie a symptómov spôsobených FIP. Prekvapivo už počas prvého týždňa liečby došlo k výraznému každodennému zlepšeniu. Preto sme tento prípad podrobne zaznamenali pre vedecké účely.

Je potrebné zmieniť niekoľko silných stránok tejto prípadovej štúdie. Po prvé, je to lacný a ľahko dostupný liek pre majiteľov mačiek, na čom môže benefitovať viac mačiek. Najmä v Číne, kde populácia domácich miláčikov poslednom desaťročí prudko vzrástla, zatiaľ čo súčasné kliniky pre domáce zvieratá nemajú dostatočné kapacity na to, aby uspokojili potreby lekárskej starostlivosti o domáce zvieratá. Mnoho domácich miláčikov musí čeliť eutanázii, pretože ich majitelia si nemôžu dovoliť drahé lieky. Po druhé, LH začne účinkovať do týždňa a FIP vylieči asi za mesiac, kým odporúčané trvanie podávania GS-441524 je 84 dní.

Aj keď rozhodnutie o podaní LH bolo založené na zhoršení klinického stavu mačky a dosiahnutých optimistických výsledkoch pouźitia LH, mali by sme s ním zaobchádzať opatrne. Na stanovenie bezpečnosti a účinnosti LH pri liečbe mačacích infekcií mačiek sú potrebné ďalšie štúdie. Je pozoruhodné, že hoci vzorky boli negatívne na FCoV, hodnoty TP a BUN boli o niečo vyššie ako normálna hodnota. Zatiaľ si nemôžeme byť istí, či príčinou boli kapsule LH alebo vírus. Doterajšie klinické štúdie neukázali, či kapsula LH má vedľajšie účinky spôsobujúci poškodenie pečene u človeka. Je zrejmé, že je potrebný ďalší výskum a dáta o hladine BUN v budúcich prípadoch. Aby sme zistili, či sa nejednalo len o ojedinelý prípad, pokusnú liečbu absolvovali aj 3 ďalšie mačky a všetky sa asi po mesiaci zotavili. Z dôvodu neúplných údajov o testoch niektorých mačiek sme ich mohli uviesť iba v doplňujúcich materiáloch.

Závery

Pokiaľ je nám známe, jedná sa o prvý prípad použitia prírodných produktov na zvrátenie (alebo klinické vyliečenie) mačky s FIP. Je potrebná štúdia s viacerými mačkami absolvujúcimi tento liečebný protokol.

Skratky

FCoV: mačací koronavírus;
FIP: Infekčná peritonitída mačiek
Kapsula LH: kapsula Lianhuaqingwen
TCM: Tradičná čínska medicína

Literatúra

  1. Pedersen NC, Sato R, Foley JE, Poland AM. Common virus infections in cats, before and after being placed in shelters, with emphasis on feline enteric coronavirus. Journal of feline medicine and surgery. 2004;6(2):83-88.
  2. Felten S, Hartmann K. Diagnosis of Feline Infectious Peritonitis: A Review of the Current Literature. Viruses. 2019;11(11).
  3. Rissi DR. A retrospective study of the neuropathology and diagnosis of naturally occurring feline infectious peritonitis. Journal of veterinary diagnostic investigation : official publication of the American Association of Veterinary Laboratory Diagnosticians, Inc. 2018;30(3):392-399.
  4. Kim Y, Shivanna V, Narayanan S, et al. Broad-spectrum inhibitors against 3C-like proteases of feline coronaviruses and feline caliciviruses. Journal of virology. 2015;89(9):4942-4950.
  5. Ko WC, Rolain JM, Lee NY, et al. Arguments in favour of remdesivir for treating SARS-CoV-2 infections. International journal of antimicrobial agents. 2020;55(4):105933.
  6. Runfeng L, Yunlong H, Jicheng H, et al. Lianhuaqingwen exerts anti-viral and anti-inflammatory activity against novel coronavirus (SARS-CoV-2). Pharmacological research. 2020;156:104761.
  7. Zhang ZJ, Morris-Natschke SL, Cheng YY, Lee KH, Li RT. Development of anti-influenza agents from natural products. Medicinal research reviews. 2020;40(6):2290-2338.
  8. Hu K, Guan WJ, Bi Y, et al. Efficacy and safety of Lianhuaqingwen capsules, a repurposed Chinese herb, in patients with coronavirus disease 2019: A multicenter, prospective, randomized controlled trial. Phytomedicine : international journal of phytotherapy and phytopharmacology. 2020:153242.
  9. Dickinson PJ, Bannasch M, Thomasy SM, et al. Antiviral treatment using the adenosine nucleoside analogue GS-441524 in cats with clinically diagnosed neurological feline infectious peritonitis. Journal of veterinary internal medicine. 2020;34(4):1587-1593.
  10. Hartmann K. Feline infectious peritonitis. The Veterinary clinics of North America Small animal practice. 2005;35(1):39-79, vi.
  11. Giori L, Giordano A, Giudice C, Grieco V, Paltrinieri S. Performances of different diagnostic tests for feline infectious peritonitis in challenging clinical cases. The Journal of small animal practice. 2011;52(3):152-157.
  12. Pedersen NC, Perron M, Bannasch M, et al. Efficacy and safety of the nucleoside analog GS-441524 for treatment of cats with naturally occurring feline infectious peritonitis. Journal of feline medicine and surgery. 2019;21(4):271-281.
  13. Pedersen NC, Kim Y, Liu H, et al. Efficacy of a 3C-like protease inhibitor in treating various forms of acquired feline infectious peritonitis. Journal of feline medicine and surgery. 2018;20(4):378-392.
  14. Sharun K, Tiwari R, Dhama K. Protease inhibitor GC376 for COVID-19: Lessons learned from feline infectious peritonitis. Annals of medicine and surgery (2012). 2021;61:122-125.
  15. Addie DD, Curran S, Bellini F, et al. Oral Mutian®X stopped faecal feline coronavirus shedding by naturally infected cats. Research in veterinary science. 2020;130:222-229.
  16. Ding Y, Zeng L, Li R, et al. The Chinese prescription lianhuaqingwen capsule exerts anti-influenza activity through the inhibition of viral propagation and impacts immune function. BMC complementary and alternative medicine. 2017;17(1):130.
  17. Liu L, Shi F, Tu P, et al. Arbidol combined with the Chinese medicine Lianhuaqingwen capsule versus arbidol alone in the treatment of COVID-19. Medicine. 2021;100(4):e24475.
  18. Duan ZP, Jia ZH, Zhang J, et al. Natural herbal medicine Lianhuaqingwen capsule anti-influenza A (H1N1) trial: a randomized, double blind, positive controlled clinical trial. Chinese medical journal. 2011;124(18):2925-2933.
  19. Ren JL, Zhang AH, Wang XJ. Traditional Chinese medicine for COVID-19 treatment. Pharmacological research. 2020;155:104743.

FIP u gravidných mačiek

24.5.2021
Niels C. Pedersen, DVM. PhD
Pôvodný článok: Feline Infectious Peritonitis in Pregnant Cats

Úvod – Gravidita je zaujímavý imunologický paradox. Aj keď sú orgány a tkanivá od jedincov rovnakého (aloštep) alebo iného druhu (xenoimplantát) považované za cudzie a zničené, pre plod, ktorý je aloštepom, to neplatí. Prevencia odmietnutia plodu je sprevádzaná udalosťami súvisiacimi s nastávajúcimi komplexnými hormonálnymi zmenami. 1-4 Účinky gravidity ovplyvňujú mnoho funkcií imunitného systému. 1-4 Hlavný vplyv však gravidita má na imunitu T lymfocytov. T-lymfocytová imunita je sprostredkovaná triedou týmusom (brzlíkom) ovplyvnených lymfocytov, ktoré sú aktívne pri identifikácii infikovaných hostiteľských buniek vyhodnotených ako cudzorodé kvôli ich interakcii s patogénmi. Imunita T-lymfocytov hrá dôležitú úlohu aj pri autoimunitných ochoreniach.

Modulácia imunity, ktorá sa vyskytuje počas gravidity, môže rôzne ovplyvňovať imunokompetenciu matky. Je známe, že gravidita zlepšuje alebo zhoršuje autoimunitné ochorenia, zvyšuje popôrodný výskyt autoimunitných ochorení a zvyšuje náchylnosť na mnoho bežných bakteriálnych, plesňových a vírusových ochorení. 4-7 Výskyt týchto chorôb je najväčší v treťom trimestri, keď sú najvyššie hladiny estradiolu a progesterónu v krvi.4

Aj keď matky môžu byť počas gravidity náchylnejšie na určité infekcie, plod zostáva chránený pred infekciami matky prostredníctvom placentárnej bariéry, ktorá oddeľuje krvný obeh matky a plodu. Aj keď je táto bariéra vysoko účinná pri zadržiavaní infekčných agens, je priepustná pre väčšinu liekov. Preto sa placentárna bariéra svojou úlohou odolávať hlavne patogénom líši od hematoencefalickej bariéry, ktorá je prekážkou tak pre lieky, ako aj patogény.

FIP a gravidita – O FIP u gravidných samíc bolo publikované iba obmedzené množsto informácií. 8-10 Na základe ďalších skúseností autora s malým počtom prípadov pozorovaných počas liečby FIP pomocou GS-441524 sa zdá, že postihnuté samice sú v čase otehotnenia v subklinickom alebo predklinickom štádiu FIP. Imunosupresívny účinok gravidity potom umožňuje infekcii prejsť do klinického štádia, zvyčajne v poslednom trimestri. Najbežnejšia klinická forma FIP u gravidných mačiek je brušná a vlhká, a klinické príznaky sa zvyčajne objavujú v neskorom štádiu gravidity, v čase pôrodu alebo krátko po ňom.

FIP u samice ovplyvňuje aj mačiatka, v závislosti od závažnosti infekcie a jej načasovania. Mačiatka buď zomierajú na začiatku gravidity, keď sú resorbované, v neskoršom štádiu gravidity potratené, alebo sa môžu narodiť choré a uhynúť skoro po narodení. 8-10 Niektoré môžu dokonca prežiť niekoľko týždňov, kým podľahnú FIP. Niektoré vrhy sa však rodia živé a pri pestúnskej starostlivosti alebo prikrmovaní z fľaše zostanú zdravé. Nie je jasné, akú úlohu pri tejto úmrtnosti zohráva infekcia. Sú skoré resorpcie a potraty plodu dôsledkom infekcie plodu od materských monocytov/makrofágov? Sú úmrtia plodu spôsobené nešpecifickým účinkom ochorenia a s ním spojenou cytokínovou búrkou? Je pravdepodobné, že pôjde o kombináciu oboch. Nie je však pochýb o tom, že niektoré mačiatka môžu byť infikované v neskorom štádiu gravidity, narodiť sa relatívne zdravé a v prvých týždňoch života sa u nich môže rozvinúť potvrdená FIP.

Príchod liečby FIP pomocou GS-441524 výrazne ovplyvnil FIP počas gravidity, osud plodov i novonarodených mačiatok. Samice, ktoré sa liečia v počiatočnom štádiu choroby, často porodia zdravé mačiatka, a ak je ich reakcia na liečbu rýchla, môžu sa o ne starať bežným spôsobom. Neuskutočnili sa žiadne štúdie, ktoré by určili, koľko GS-441524 sa dostane k plodu z krvného obehu matky, ale je to malá molekula a mala by ľahko prechádzať placentárnou bariérou. Ukazuje sa, že GS-441524 nemá žiadne negatívne účinky na vývoj plodu alebo mačiatkok, keď sa podáva samici počas druhého alebo tretieho trimestra a/alebo počas novorodeneckého obdobia. Predpokladá sa, že GS-441524 ľahko prechádza zo samíc na mačiatka v mledzive (colostre) a mlieku.

Aktuálnym odporúčaním je zaobchádzať s gravidnými samicami tak, akoby neboli gravidné, a pokiaľ to nie je nevyhnutné, nezasahovať do gravidity alebo neonatálnej starostlivosti. Postupné ultrazvukové vyšetrenia poskytnú presný obraz o tom, čo sa deje s plodmi. Niektoré budú mŕtve a vstrebávajú sa in utero, iné sú slabé a potratené, iné majú normálny vzhľad a po narodení sú zdravé. Samice zvyčajne reagujú rýchlo na liečbu GS-441524 a väčšina z nich je natoľko zdravých, aby mohli svoje mačiatka ošetrovať a starať sa o ne. Okrem samotnej liečby by samiciam mali byť umožnené normálne interakcie s ich mačiatkami. Mačiatka nepotrebujú individuálnu liečbu, pretože dostatočné množstvo GS-441524 je pravdepodobne poskytované materským mliekom. Mačiatka, ktoré sa narodia zdravé a nie sú kojené, je možné umelo prikrmovať a každodenne monitorovať ich váhu. Liečba GS-441524 by sa mala použiť iba vtedy, ak nedostatok prírastku hmotnosti a a aktivity naznačujú, že môže byť potrebná.

Referencie

  1. Robinson DP, Klein SL. Pregnancy and pregnancy-associated hormones alter immune responses and disease pathogenesis. Horm Behav. 2012;62:263-271.
  2. Aghaeepour N, Ganio EA, Mcilwain D, et al. An immune clock of human pregnancy. Science Immunology 2017; 2 (15):eaan2946
  3. Pazos M, Sperling RS, Moran TM, Kraus TA. The influence of pregnancy on systemic immunity. Immunol Res. 2012;54:254-261.
  4. Kourtis AP, Read JS, Jamieson DJ. Pregnancy and Infection. N Engl J Med. 2014;370(23):2211-2218.
  5. Ledan S Infectious Diseases in Pregnancy. US Pharm. 2020;45(9):22-26.
  6. Arora N, Sadovsky Y, Dermody TS, Coyne CB. Microbial Vertical Transmission during Human Pregnancy. Cell Host Microbe. 2017;21(5):561-567. 
  7. Racicot K, Mor G. Risks associated with viral infections during pregnancy. J Clin Invest. 2017;127(15):1591-1599.
  8. Pastoret PP, Henroteaux M. Epigenetic transmission of feline infectious peritonitis. Comp Immunol Microbiol Infect Dis. 1978;1:67-70.
  9. Addie DD, Jarrett O. A study of naturally occurring feline coronavirus infection in kittens. Vet Rec, 1992;130:133–137.
  10. Addie D.D., Jarrett O. Feline coronavirus infections. In: Greene C.E., editor. Infectious diseases of the dog and cat. WB Saunders; Philadelphia: 1990. pp. 300– 312. 

FIP – Diferenciálne diagnózy 2

Prečítajte si informácie o chorobách, ktoré sú často zamieňané s FIP. Voľné pokračovanie článku o diferenciálnych diagnózach FIP.

Toxoplazmóza Prenos/epidemiológia: Získaná vertikálnym prenosom (u mladých mačiek) alebo lovom, či konzumáciou surového mäsa
Klinické príznaky: Mačky môžu vykazovať postihnutie pečene, pľúc, nervového systému, svalov a/alebo pankreasu. Medzi príznaky patrí letargia, anorexia, dyspnoe (môže sa vyskytnúť zápal pľúc a/alebo pleurálny výpotok), žltačka, brušný výpotok, uveitída (najmä zadná) a/alebo neurologické príznaky
Diagnostiké vyšetrenie: Klinická toxoplazmóza je v porovnaní s FIP menej častá  a zvyčajne nie je spojená so závažnou hyperglobulinémiou alebo zníženým pomerom albumín/globulín, ktorý sa často vyskytuje pri FIP. Môže sa vyskytnúť hyperbilirubinémia. Pri diagnostike môže byť užitočná sérologia (vysoký titer IgM alebo stúpajúci titer IgG). Organizmy možno nájsť pri odbere vzoriek a mikroskopickom vyšetrení napríklad pľúcnych alebo lymfatických uzlín. Na takýchto vzorkách sa môže tiež uskutočniť PCR na preukázanie prítomnosti DNA Toxoplasma gondii. V prípadoch s neurologickými príznakmi sa môže urobiť PCR v mozgovomiechovom moku (CSF)
Liečba: Ak existuje podozrenie na toxoplazmózu, je možné zahájiť skúšobnú liečbu klindamycínom, aby sa zistilo, či sa dostaví pozitívna reakcia.
Lymfocytická cholangitída (LC) Epidemiológia: Myslelo sa, že perzské mačky môžu mať predispozíciu k tomuto ochoreniu, ale novšie štúdie predispozíciu tohto plemena nepotvrdili.
Klinické príznaky: Často sa spája so žltačkou. Niektoré mačky s LC majú brušný výpotok
Diagnostické vyšetrenie: Povaha výpotku je z hľadiska koncentrácie proteínu podobná ako pri FIP (tj. vysoká), aj keď počet buniek pri LC je zvyčajne vyšší ako počet pozorovaný pri FIP. Pri LC je možné pozorovať aj hyperglobulinémiu. Prípady LC aj FIP môžu byť hyperbilirubinemické. Na rozdiel od FIP je LC tiež obvykle spojená s výrazným zvýšením pečeňových enzýmov, najmä cholestatických markerov (tj. alkalickej fosfatázy a gama-glutamyltransferázy), v porovnaní s miernejším alebo stredným zvýšením, ktoré sa vyskytuje u mačiek FIP. Ďalej, mačky s LC nie sú zvyčajne také choré ako tie s FIP; napríklad môžu byť skôr polyfágne, ako trpieť nechutenstvom
Neoplázia (napr. lymfóm, brušný karcinóm) Epidemiológia: Lymfóm môže postihovať mladé mačky, ale vyskytuje sa u mačiek všetkých vekových skupín. U starších mačiek sa zvyčajne vyskytujú ďalšie neoplázie. Ohniskové lézie FIP v čreve alebo (najmä mezenterických) lymfatických uzlinách sa môžu prejavovať veľmi podobne ako prípady so zjavne solitárnymi novotvarmi týchto orgánov.
Klinické príznaky: Lymfóm môže postihovať viac telesných orgánov a podobne ako FIP môže viesť k lymfadenopatii a/alebo bikavitárnym výpotkom. Mačky sú často systémovo choré
Diagnostické vyšetrenie: Odber vzoriek postihnutých tkanív alebo výpotkov, po ktorých nasleduje cytológia, môže potvrdiť skôr diagnózu lymfómu ako zmiešané zápalové bunky, ktoré sa zvyčajne vyskytujú pri cytologickom odbere tkanív ovplyvnených FlP. Ďalšie neoplastické lézie (napr. karcinómy) môžu byť diagnostikované cytológiou výpotkov
Pankreatitída Klinické príznaky: U mačiek sa môžu prejavovať anorexia, žltačka a strata hmotnosti. Výrazná horúčka nie je zvyčajný príznakom, hoci sa môže vyskytnúť v prípadoch akútnej pankreatitídy, ktoré sú spojené so silnou bolesťou a/alebo sepsou.
Diagnostické vyšetrenie: Môže sa vyskytnúť hyperbilirubinémia. V akútnych prípadoch je niekedy prítomné malé množstvo brušnej tekutiny (zvyčajne s vysokou koncentráciou bielkovín a vysokým počtom buniek [nedegenerované neutrofily], na rozdiel od vysokého obsahu bielkovín a malého množstva buniek v efúzii u FIP).Pankreatitídu možno diagnostikovať ultrasonografickým vyšetrením pankreasu a meraním imunoreaktivity mačacej pankreatickej lipázy.
Liečba: Môže byť nasadená skúšobná liečba antiemetikami a analgetikami
Retrovírusová infekcia Epidemiológia: Infekcie vírusom mačacej leukémie (FeLV) a vírusom mačacej imunodeficiencie (FIV) sa vyskytujú častejšie u dospelých, ako u mladých mačiek, ale pri infekcii FeLV zohráva úlohu imunita súvisiaca s vekom, pričom mladšie mačky sú  na infekciu náchylnejšie. Pravdepodobnosť výskytu oboch vírusov je väčšia u vonkajších mačiek. FeLV postihuje samcov i samice, zatiaľ čo samci majú zvýšené riziko infekcie FIV.
Klinické príznaky: Infekcia FeLV aj FIV môže byť spojená s pyrexiou, letargiou, lymfadenopatiou a/alebo uveitídou.
Diagnostické vyšetrenie: Infekcia FIV môže byť spojená s výraznou hyperglobulinémiou. Upozorňujeme, že retrovírusová pozitivita môže byť rizikovým faktorom pre rozvoj FIP
Mykobakteriálna infekcia vrátane tuberkulózy (TB) Epidemiológia: V prevalencii existujú geografické rozdiely a infekcia je zvyčajne spojená s prístupom vonku a lovom
Klinické príznaky: Môže sa vyskytnúť lymfadenopatia, respiračné príznaky a/alebo uveitída, ako aj mokvajúce nehojace sa rany. Postihnuté mačky môžu byť napriek chorobe v relatívne dobrom stave a pyrexia a nechutenstvo nie sú bežnými príznakmi, aj keď sa môžu vyskytnúť akútne prejavy napríklad dýchavičnosti. Mykobakteriálne infekcie, ktoré postihujú pľúca, zvyčajne postihujú pľúcny parenchým v porovnaní s pleurálnym výpotkom ako pri FIP
Diagnostické vyšetrenie: Mykobakteriálna infekcia zvyčajne nie je spojená so závažnou hyperglobulinémiou alebo zníženým pomerom albumín/globulín pozorovaným pri FIP. Môže sa vyskytovať hyperkalcémia. Cytológia postihnutých lymfatických uzlín alebo orgánov vykazuje zápalové zmeny (výrazné makrofágy, ale zápal môže byť podobný ako u FIP s pyogranulomatóznymi zmenami). Ziehl-Neelsenovo farbenie vzoriek z  cytológie alebo biopsie môže byť pozitívne a vzorky je možné poslať na kultiváciu (aj keď výsledky s pozitívnou kultiváciou môžu u pomaly rastúcich organizmov trvať až týždne, a pri niektorých druhoch mykobaktérií môže byť kultivácia nemožná). Je k dispozícii interferónový gama test, ktorý sa vykonáva na vzorkách krvi a pomáha pri diagnostike podozrivých prípadov mačacej TB
Pyothorax Klinické príznaky: Môže byť spojený s pyrexiou. Je vidieť pleurálny výpotok
Diagnostické vyšetrenie: Analýza hrudného výpotku odhalí veľmi vysoký počet buniek v dôsledku výrazného neutrofilného zápalu s degeneratívnymi zmenami a možným výskytom intracelulárnych baktérií, hoci akákoľvek predchádzajúca liečba antibiotikami môže spôsobiť, že prítomnosť baktérií sa nepotrvdí. Unikavitárny výpotok.
Sepsa Môže byť spojená s mnohými stavmi; napríklad so septickou peritonitídou, pyotoraxom, pneumóniou, pyelonefritídou
Klinické príznaky: U mačiek sa môže vyskytnúť pyrexia (aj keď sa u mačiek môžu prejaviť aj nízke teploty), tachykardia alebo bradykardia, tachypnoe a ďalšie príznaky spojené so zdrojom sepsy.
Diagnostické vyšetrenie: Môže byť prítomná leukocytóza, neutrofília a hyperbilirubinémia (pri absencii zvýšenej aktivity pečeňových enzýmov).
Septická peritonitída Klinické príznaky: Môžu byť spojené s pyrexiou. Prítomnosť brušného výpotku
Diagnostické vyšetrenie: Analýza brušného výpotku odhalí veľmi vysoký počet buniek v dôsledku výrazného neutrofilného zápalu s degeneratívnymi zmenami a pravdepodobne intracelulárnymi baktériami, hoci akákoľvek predchádzajúca liečba antibiotikami môže spôsobiť, že baktérie nie sú zistené. Unikavitárny výpotok. Koncentrácia glukózy v brušnom výpotku je nižšia, ako koncentrácia v krvi (> 1,1 mmol/l)
Kongestívne srdcové zlyhanie (CHF) Klinické príznaky: Je možný výskyt bikavitárnych výpotkov v pleurálnom a peritoneálnom priestore, aj keď u mačacích CHF sú pleurálne výpotky oveľa častejšie  ako brušné výpotky, a pri mačacích CHF sa veľmi zriedka vyskytujú samostatné brušné výpotky. Prítomnosť cvalu, arytmie a pravdepodobne srdcového šelestu zvyšuje index podozrenia na CHF. Pri pravostrannej CHF môže byť prítomná distenzia jugulárnych žíl.
Diagnostické vyšetrenie: Tekutina je modifikovaný transudát s malým obsahom bielkovín, na rozdiel od tekutiny pozorovanej pri FIP. Echokardiografia potvrdí srdcové ochorenie a CHF.
Besnota (Vzteklina) V krajinách, kde je besnota endemická, sa musí považovať za diferenciálnu diagnózu u neočkovaných mačiek s neurologickými príznakmi, najmä s akútnymi zmenami správania a progresívnou paralýzou.
Upravené od Tasker S a Dowgray so súhlasom BSAVA Publications, Gloucester

Infekcia FeLV a jej vzťah k FIP

21.5.2021
Niels C. Pedersen, DVM, PhD
Pôvodný článok: Synopsis of Feline leukemia virus infection and its relationship to feline infectious peritonitis

Základné fakty – Vírus mačacej leukémie (FeLV) je retrovírus príbuzný s vírusom myšej leukémie, ktorý existoval medzi divými mačkami už desaťtisíce rokov pred jeho objavením v roku 1964 (Jarrett a kol., 1964). Infekcia FeLV sa vyskytuje hlavne u mačiek mladších ako 3-8 rokov (Pedersen, 1998, 1991). Hlavným zdrojom infekcie sú mačky v asymptomatickom štádiu infekcie. Vírus sa vylučuje vo všetkých výlučkoch a telesných sekrétoch a šíri sa blízkym kontaktom (Pedersen a kol., 1977). Infekcia FeLV sa v prírode zvyčajne vyskytuje potom, čo sú mačky dostatočne staré na to, aby sa mohli socializovať, a primárna fáza infekcie je buď bezpríznaková, alebo prechodná a končí dlhotrvajúcou imunitnou reakciou u 95% alebo viac mačiek. Iba malá časť infekcií v prírode vedie k chronickej virémii. Ochorenia spojené s FeLV sa vyskytujú prevažne u malej skupiny mačiek s pretrvávajúcou infekciou.
Ochorenie FeLV u divých mačiek nevyvolalo pred jeho objavením zvýšený záujem a akákoľvek súvisiaca úmrtnosť zostala medzi spektrom chorôb, ktoré postihujú divé mačky, nepovšimnutá. To, čo vieme o patogenéze infekcie FeLV u divokých mačiek, preto pôvodne pochádzalo zo štúdií uskutočnených v 70. a 80. rokoch na skupinách domácich mačiek a laboratórnych infekciách (prehľad Pedersen, 1998, 1991).

Epizootiológia – zdá sa, že FeLV nepozorovane prestúpila z prírody do populácie domácich mačiek niekedy pred 60. rokmi 20. storočia a odvtedy došlo k rapídnemu nárastu incidencie. Prvé náznaky, že by za touto chorobou mohol stáť vírus, prišli v roku 1964 s identifikáciou intracelulárnych častíc pripomínajúcich vírus myšej leukémie v domácnosti mačiek s viacerými prípadmi lymfosarkómu (Jarrett a kol., 1964). Naše chápanie závažnosti infekcie FeLV a jej vzťahu k chorobám iným ako lymfosarkóm sa začalo v roku 1969 vo výskumných laboratóriách (Hardy a kol., 1969). Hlavné spektrum chorôb súvisiacich s FeLV vzišlo z komerčnej aplikácie nepriameho fluorescenčného testu protilátok (IFA) na detekciu viremických mačiek, počnúc rokom 1972 (Hardy, 1973; Hardy a Zuckerman, 1991). Nasledovali rýchle domáce testy FeLV založené na ELISA (Lutz a kol., 1979).

FeLV bola retrospektíne identifikovaná ako hlavná príčina ochorení domácich mačiek v 60. rokoch a prospektívne v 70. a 80. rokoch. Čo spôsobilo panzootiu infekcie FeLV a chorôb u domácich mačiek? Ako sa neskôr zistilo, človekom riadené prostredie s početnou populáciou mačiek, najmä kde boli mladé mačiatka v kontakte so staršími infikovanými mačiatkami a mačkami, sa ukázalo ako ideálne pre prenos z mačky na mačku. Závažnosť týchto expozícií spolu s mladým vekom (Hoover et al., 1976) a inými stresovými faktormi prostredia výrazne zvýšil výskyt pretrvávajúcich infekcií oproti prechodným infekciám (Pedersen a kol., 1977). Zatiaľ čo iba malé percento mačiek v prírode sa stáva trvale viremických, u tretiny alebo viac mačiek exponovaných v kontrolovanom laboratórnom prostredí sa vyvinula perzistentná virémia.

Koniec panzootie FeLV nastal s rozsiahlym „testovaním a oddeľovaním“ viremických mačiek, ako dokumentujú Weijer a kolegovia (1986). Testovanie a oddeľovanie boli neskôr doplnené účinnými vakcínami. Je pozoruhodné, že infekcia FeLV už nie je hlavnou príčinou ochorení v domácnostiach s mnohopočetným výskytom mačiek. Opäť existuje ako prírodná infekcia, s pozitivitou iba u 1-5% divokých mačiek. Niekoľko viremických mačiek, najmä mladších, sa však naďalej objavuje medzi mačkami premiestnenými z prírody do prostredia útulkov a dočasných domovov.

Patogenéza – primárna infekcia FeLV je svojou povahou do značnej miery nevýrazná a ukončená silnou imunitnou odpoveďou a celoživotnou imunitou (prehľad Pedersen, 1991). Ak je však rozsah expozície dostatočne veľký a/alebo je nejakým spôsobom znížená imunita mačky, môže dôjsť k primárnemu a prechodnému ochoreniu. Táto fáza sa môže prejaviť horúčkou, generalizovanou lymfadenopatiou, nízkym počtom krvných doštičiek a WBC a miernou anémiou. Po tomto štádiu často nasleduje dlhotrvajúca a do značnej miery bezpríznaková virémia trvajúca mesiace a roky. U mačiek s pretrvávajúcou infekciou FeLV sa nakoniec vyvinie niekoľko primárnych a sekundárnych chorôb, ktoré sú zvyčajne smrteľné. Zvyčajný odhad úmrtnosti u viremických mačiek je okolo 50% ročne (Pedersen, 1988), čo znamená, že po troch rokoch zostane nažive iba 12,5% z nich. Pretože infekcia v prírode sa vyskytuje hlavne u mladších mačiek a väčšina z nich uhynie do 3 rokov, v prírode sa u mačiek starších ako 5-8 rokov pozoruje len málo prípadov infekcie FeLV.

Primárne choroby FeLV sú spojené s rôznymi mutantami infikujúceho kmeňa a zahŕňajú aplastickú anémiu, rôzne myeloproliferatívne poruchy a lymfóm, ktorý je zvyčajne generalizovaný, očný alebo neurologický (zhrnutie Pedersen 1988, 1991). Sekundárne ochorenie spojené s FeLV je spôsobené niekoľkými bežnými infekčnými agensmi mačiek, ktoré zvyčajne nie sú veľmi patogénne, ale ktoré sa zosilňujú potlačením imunity T-lymfocytov spojenej s FeLV.

Súvislosť infekcie FeLV a FIP – Zistilo sa, že jedna tretina až polovica mačiek s FIP počas 70. a 80. rokov bola infikovaná FeLV (Cotter a kol., 1973; Pedersen a kol., 1977). Spojenie medzi týmito dvoma infekciami sa ukázalo, keď boli mladé laboratórne mačky s infekciou enzootickým mačacím enterickým koronavírusom (FECV) chované spolu s nosičmi FeLV (Pedersen a kol., 1977). Keď sa tieto mladé mačky trvale infikovali FeLV, začali sa zvyšovať ich titre koronavírusových protilátok a behom niekoľkých týždňov alebo mesiacov sa objavili klinické príznaky FIP. FIP sa vyskytla iba u jednej tretiny mačiek s virémiou FeLV, a u dvoch tretín mačiek, ktoré sa stali imunnými voči FeLV, sa nezistili žiadne prípady FIP. V neskoršej štúdii boli mačky chronicky infikované laboratórnym kmeňom vírusu mačacej imunodeficiencie (FIV) experimentálne infikované FECV (Poland a kol., 1996). U dvoch z 19 mačiek v chronickom imunosupresívnom štádiu infekcie FIV sa vyvinula FIP, zatiaľ čo žiadna z 20 FIV neinfikovaných „spolubývajúcich“ neochorela. Štúdie podobné tejto s imunosupresiou FeLV a FIV boli dôležité pre záver, že vírus FIP (FIPV) bol bežne sa vyskytujúcim mutantom FECV a minimálnym patogénom u zdravých imunokompetentných mačiek.

Čo znamená infekcia FeLV pre liečbu FIP? Priznávam sa, že nie som zástancom liečby FIP u mačiek pozitívnych na FeLV. Vieme, že infekcia FeLV indukuje typ imunosupresie, ktorý vedie k rozvoju FIP. Mám tiež podozrenie, že úspešná liečba FIP antivirotikami, ako je GS-441524, spočíva v obnovení ochrannej imunitnej odpovede na FIPV. Ak je to pravda, FeLV indukovaná imunosupresia môže interferovať s imunitou FIPV a znižovať mieru vyliečenia pri liečbe GS alebo interferovať s akoukoľvek dlhodobou ochrannou imunitou vyvolanou úspešnou antivírusovou liečbou. Je potrebné vziať do úvahy ďalšie dva problémy s liečením takýchto mačiek. Chov mačiek infikovaných FeLV spôsobuje finančné a fyzické ťažkosti, pokiaľ ide o rutinnú veterinárnu starostlivosť a karanténu náchylných mačiek. Je tiež známe, že iba 10% mačiek infikovaných FeLV prežije dlhšie ako tri roky. Tieto fakty vyvolávajú otázky ohľadne najlepšieho využívania prostriedkov dočasných/záchranných skupín a jednotlivcov – na mačky iba s FIP, mačky s iným liečiteľným ochorením alebo na zdravé mačky čakajúce na domov?

Záver – Je nepravdepodobné, že by sa pestúni/záchranári rozhodli neliečiť FIP u FeLV pozitívnych mačiek. Rozhodnutie liečiť FIP u takýchto mačiek však musí v prvom rade vychádzať z presnosti počiatočného testu FeLV. Asi 5 zo 100 pozitívnych in-house testov FeLV ELISA u zdravej populácie mačiek bude falošne pozitívnych. Ak je výskyt FeLV v populácii mačiek pochádzajúcich z ulice 1%, falošne pozitívne výsledky budú päťkrát častejšie ako skutočné pozitivity. Preto je dôležité, aby boli pozitívne testy ELISA potvrdené ďalším testom, ako je PCR. Majitelia by sa mali vždy, keď je to možné, uistiť, že tieto mačky nemajú iné choroby spojené s FeLV, ako je aplastická anémia, lymfóm alebo myeloproliferatívne poruchy. Majitelia mačiek, ktorí sa rozhodnú pre liečbu GS, by sa tiež mali podeliť o krátkodobé a dlhodobé výsledky svojho úsilia, aby bolo možné v tejto skupine FIP získať lepšiu prognózu.

Referencie

  • Cotter SM, Gillmore CE, Rollins C. 1973. Multiple cases of feline leukemia and feline infectious peritonitis in a household. J Am Vet Med Assoc 162:1054-1058.
  • Hardy WD Jr., et al. Feline leukemia virus: occurrences of viral antigen in the tissues of cats with lymphosarcoma and other diseases. Science 1969, 166:1019-1021. 
  • Hardy WD Jr. Horizontal transmission of feline leukemia virus in cats. Nature 1973, 244:266269. 
  • Hardy WD Jr, Zuckerman EE. Ten-year study comparing enzyme-linked immunosorbent assay with the immunofluorescent antibody test for detection of feline leukemia virus infection in cats. J Am Vet Med Assoc. 1991, 199:1365-73.
  • Hoover EA, et al. Feline leukemia virus infection: Age-related variation in response of cats to experimental infection. J Natl Cancer Inst. 1976, 57:365-369. 
  • Jarrett WFH, et al., Leukemia in the cat. A virus-like particle associated with leukemia (lymphosarcoma). Nature 1964, 202:567-56.
  • Lutz H, et al. The Demonstration of Antibody Specificity by a New Technique. The Gel
  • Electrophoresis-Derived Enzyme-Linked Immunosorbent Assay (GEDELISA) and its Application to Antibodies Specific for Feline Leukemia Virus.  J Histochem Cytochem. 1979, 27:1216-1218.
  • Pedersen NC. Feline Infectious Diseases. American Veterinary Publications, Inc., Goleta, CA, USA, 1988.  
  • Pedersen NC. Feline leukemia virus infection. In: Feline Husbandry. Disease and management in the multiple-cat environments. American Veterinary Publications, Inc., Goleta, CA, USA, 1991, pp210-228. 
  • Pedersen NC, Theilen G, Keane MA, Fairbanks L, Mason T, Orser B, Che CH, Allison C. 1977. Studies of naturally transmitted feline leukemia virus infection. Am J Vet Res 38:1523-31.
  • Poland AM, Vennema H, Foley JE, Pedersen NC. 1996. Two related strains of feline infectious peritonitis virus isolated from immunocompromised cats infected with feline enteric coronavirus. J Clin Micro 34:3180-3184. Weijer K, de Haag U, Osterhaus A. 1986. Control of feline leukemia virus infection by a removal programme. Vet Rec, 119, 555-556.

Príbeh o doplnkoch pre domácich miláčikov

6. Apríl 2021
Niels C. Pedersen, DVM PhD
Pôvodný článok: The Story About Supplements for Pets like Cats

Používanie doplnkov pre psy a mačky je čoraz bežnejšie, čo odzrkadľuje trend využívania doplnkov pre ľudí. Všimol som si tiež, že mnoho majiteľov mačiek používa početné doplnky na podporu liečby FIP pomocou GS-441524. Silne cítim, že tieto doplnky nemajú žiadny účinok a majiteľov stoja obrovské množstvo peňazí. Niektorí majitelia sa pre užívanie doplnkov rozhodnú sami, v niektorých prípadoch ich však používajú na odporúčanie svojich veterinárnych lekárov. Na doplnky sa ľudia spoliehajú aj v tých častiach sveta, kde je nedostatok veterinárnej starostlivosti. V mnohých prípadoch sú „predpísané“ na prevenciu, spomalenie alebo zvrátenie konkrétnych zdravotných stavov. V skutočnosti sa ale často používajú len kvôli potrebe niečo urobiť, a aj keď nefungujú, tak aspoň neublížia. V niektorých prípadoch stačí len náznak, že konkrétny orgán „potrebuje určitú formu pomoci“. Značná časť testovacích panelov vykonaných dokonca u zdravých zvieratách bude vykazovať jednu alebo viac podozrivých hodnôt, najmä u krvi, pečene alebo obličiek. Takéto hodnoty by sa nemali používať ako dôvod na predpisovanie alebo predaj doplnkov. Ako človek, ktorý verí vo vedecké metódy a klinické skúšky zamerané na zaistenie bezpečnosti a účinnosti, nemôžem s čistým svedomím odporučiť majiteľom používať nevyskúšané doplnky bez lekárskeho predpisu, ktoré tvrdia, že majú predchádzať, zmierňovať alebo liečiť choroby.

Som si vedomý mnohých svedectiev, ktoré existujú na webe, a ktoré dokazujú účinnosť širokej škály výrobkov. Existuje však aj veľa článkov z renomovaných zdrojov, ktoré podporujú moje presvedčenie. Nižšie citujem úryvky z takýchto článkov.


McKenzie B. Desať najlepších doplnkov pre domáce zvieratá: Fungujú? Science Based Medicine, 19. mája 2011. https://sciencebasedmedicine.org/the-top-ten-pet-supplements-do-they-work/.

Trápenie bohatých

„Napísalo sa už mnoho o podnikaní s výživovými doplnkami, priemysle za miliardy dolárov so silnými politickými väzbami, a o žalostnej neadekvátnosti regulácie, ktorá umožňuje rozsiahly marketing doplnkov bez solídneho vedeckého základu alebo vedeckých dôkazoch. …………. . Marketing použitý na propagáciu týchto doplnkov samozrejme ide nad rámec čohokoľvek odôvodneného skutočnými vedeckými dôkazmi a je takmer všeobecne nedôveryhodný. Rovnako aj svedectvá a anekdoty o ich účinkoch, či už od pacientov, majiteľov domácich miláčikov, veterinárnych lekárov alebo laureátov Nobelovej ceny, sú iba príbehmi, ktoré nemajú takmer žiadnu dôkaznú hodnotu. A keďže väčšina dobrých nápadov v medicíne sa nakoniec nestane skutočnou a účinnou klinickou terapiou, je pravdepodobné, že sa ukáže, že i mnohé z týchto ešte atraktívnejších produktov sa ukážu ako neúčinné alebo budú ukrývať neznáme riziká. Bez adekvátnych podporných dôkazov a bez účinnej kontroly kvality, regulácie a dohľadu po uvedení na trh si nikdy nemôžeme byť istí, že ich používaním pomáhame a neubližujeme našim pacientom. “


Finno CJ. Veterinárne doplnky pre zvieratá a nutraceutiká. Nutr. dnes. 2020; 55 (2): 97-101. doi: 10,1097/nt,0000000000000399. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC7802882/.

„Tvrdenia o účinnosti mnohých doplnkov a nutraceutík pre domáce zvieratá sú často založené na subjektívnych metódach hodnotenia vrátane posudkov vlastníkov, keď neboli dôsledne testované v dobre navrhnutých klinických štúdiách a publikované v odborných časopisoch, a preto by sa na ne malo nazerať skepticky . Aj keď sú výsledky extrapolované zo štúdií uskutočňovaných na ľuďoch alebo na modeloch hlodavcov cenné pre medzidruhové porovnania, nezohľadňujú rozdielnu farmakokinetiku a farmakodynamiku jednotlivých druhov. Ďalej sa veľa doplnkov a nutraceutík pre domáce zvieratá konzumuje perorálne, a biologická dostupnosť orálne užívaných liekov sa medzi jednotlivými druhmi veľmi líši. Spotrebiteľom by sa tiež malo odporučiť, aby boli skeptickí k marketingovým tvrdeniam založených na testoch in vitro. Napríklad veľa deklarovaných benefitov doplnkov na kĺby pre domácich miláčikov je založených na testoch in vitro, ktoré sa často spoliehajú na veľmi vysoké dávky priamo aplikované na explantáty chrupavky alebo kultivované chondrocyty. “


Aliancia pre výživu domácich miláčikov. Ako sú regulované výživové doplnky pre zvieratá? https://petnutritionalliance.org/site/pnatool/how-are-dietary-supplements-for-animals-regulated/.

Odpovede:

  • Pokiaľ ide o zvieratá, Úrad pre kontrolu potravín a liečiv (FDA), Centrum pre veterinárnu medicínu (CVM) v USA reguluje dve triedy výrobkov: potraviny a lieky. V závislosti na zamýšľanom použití sa výživový doplnok pre zvieratá považuje za potravinu alebo liek. Pre „doplnky“ pre zvieratá neexistuje samostatná kategória.
  • V zákone o zdravotných výživových doplnkoch (DSHEA) z roku 1994 bol definovaný pojem „výživový doplnok“, ktorý však nešpecifikoval, či sa definícia vzťahuje na ľudí, zvieratá alebo na obidve. Hlavným prínosom DSHEA bolo preklasifikovanie určitých regulovaných potravinových zložiek na potravinové prísady, ktoré pred uvedením na trh vyžadujú schválenie.
  • V roku 1996 CVM zverejnilo oznámenie vo federálnom registri, v ktorom vysvetlilo, že DSHEA sa nevzťahuje na živočíšne produkty.
  • Federálne zákony a nariadenia jednoducho nepoznajú kategóriu výrobkov pre zvieratá, ktorá sa nazýva „výživové doplnky“. V závislosti na uvedenom zamýšľanom použití je produktom buď potravina, alebo liek, regulovaný FDA.
  • Mnoho majiteľov kupuje pre svoje domáce zvieratá výrobky určené pre humánne použitie. Je dôležité vedieť, že výrobcovia výživových doplnkov pre ľudí nemusia poskytovať FDA dôkazy o tom, že ich doplnky sú účinné alebo bezpečné. Nie je im však dovolené (vedome) uvádzať na trh nebezpečné alebo neúčinné výrobky.
  • Len čo je výživový doplnok pre ľudí uvedený na trh, musí FDA pre jeho obmedzenie alebo stiahnutie z trhu dokázať, že výrobok nie je bezpečný.
  • Naopak, predtým, ako výrobcovia dostanú povolenie uviesť liek na trh, musia získať súhlas FDA poskytnutím presvedčivých dôkazov o tom, že je bezpečný a učinný.
  • Niektoré doplnky, ktoré sú bezpečné pre ľudí, môžu byť toxické pre psy alebo mačky. Preto je nevyhnutné, aby sa majitelia domácich zvierat pred podaním výživového doplnku svojmu domácemu miláčikovi poradili so svojimi veterinárnymi lekármi.

FIP – Diferenciálne diagnózy 1

Pôvodný článok: Feline Infectious Peritonitis Differential Diagnoses

„Mojej mačke práve diagnostikovali FIP. Môj veterinár hovorí, že choroba je smrteľná a neexistuje žiadna liečba. Ako je to možné? Čo môžem urobiť? Cítim sa bezmocný. Milujem svoju mačku, nemôžem zniesť myšlienku, že by som o ňu prišiel … Prosím pomôžte. “

Neexistujú slová, ktoré by opísali pocit úplného zúfalstva a bezmocnosti. Vieme, tiež sme to zažili.

Nie ste sami a nie ste úplne bezmocní. Existujú dôležité kroky, ktoré musíte teraz spraviť, aby ste sa ubezpečili, že sa urobilo všetko pre zachovanie zdravia vašej mačky.

Úplne prvým krokom je určenie správnej diagnózy. Prečo? Pretože omyly sú časté. Stanovenie nesprávnej diagnózy môže mať zničujúcejšie následky, ako žiadna diagnóza. Odhaduje sa, že u 80% mačiek s diagnostikovanou neefúznou (suchou) FIP je príčinou stavu iná, zvyčajne liečiteľná choroba. Pravdepodobnosť omylu v prípade efúznej (vlhkej) FIP je nižšia, ale stále je veľmi variabilná v závislosti od veku a plemena mačky.

Uistenie sa, že máte správnu diagnózu, znamená rozhovor s veterinárom, aj keď by to malo znamenať spochybnenie jeho záverov. Môže to zachrániť život vašej mačky, tak to jednoducho urobte. Nenechajte sa zastaviť strachom, aby ste neurazili svojho veterinára, alebo tým, že nemáte žiadne lekárske alebo veterinárne vzdelanie, najmä ak váš veterinárny lekár odporučí eutanáziu, aby vaša mačka zbytočne netrpela. Keby išlo o vaše dieťa, brata alebo vás samých, prijali by ste diagnózu bez výhrad?

Najčastejšou príčinou nesprávnej diagnózy je pozitívny titer FCoV. 95% mačiek je prenášačom FCoV (mačací koronavírus). Neznamená to ale, že sa u nich vyvinie FIP. Iba u 5% z nich sa nakoniec vyvinie mačacia infekčná peritonitída.

Často počúvame „Moja mačka mala pozitívny test na FIP“.

Povedzme si to úplne jasne: test na FIP ​​neexistuje. Jednoducho neexistuje. Nie je to tak, ako ste zvyknutí u FIV alebo FeLV. Mnohí ľudia znovu a znovu – vrátane niektorých veterinárov – vám budú tvrdiť, že mačka má FIP iba ​​na základe pozitívneho titra FCoV. Ešte horšie je, že niektorí odporučia eutanáziu hneď na mieste. Nedovoľte, aby to bol prípad aj vašej mačky. Poďme si navždy vyjasniť tento omyl: Pozitívny titer FCoV NEZNAMENÁ, že vaša mačka má FIP.

FIP je ťažko diagnostikovateľná choroba a diagnóza je založená skôr na vylučovacom procese, najmä v prípade suchej (neefúznej) formy.

Nižšie je uvedená tabuľka diferenciálnych diagnóz pre suchú aj vlhkú formu FIP. Tento zoznam nie je kompletný. Porozprávajte sa o týchto možnostiach so svojím veterinárnym lekárom.

Vlhká FIP

EfúziaDiferenciálna diagnóza
Peritoneálny (brušný) výpotokBakteriálna peritonitída
Kongestívne srdcové zlyhanie
Cystická oblička
Glomerulonefritída
Ochorenie pečene
Lymfocytická cholangitída
Malabsorpcia
Neoplázia
Pankreatitída
Pansteatitída
Parazitizmus
Tehotenstvo
Pyometra
Toxoplazmóza
Trauma
Tuberkulóza
Pleurálny (pľúcny) výpotokSrdcová nedostatočnosť
Chylothorax
Kryptokokóza
Diafragmatická kýla
Torzia pľúcneho laloku
Neoplázia (lymfóm)
Pyothorax

Suchá FIP

Klinické príznakyDiferenciálna diagnóza
strata chuti do jedla
ataxia
matná srsť
zväčšené mezenterické lymfatické uzliny
žltačka
letargia
očné lézie
pyogranulómy
pyrexia
úbytok hmotnosti
anémia
neurologické príznaky
…
Nie sú uvedené všetky príznaky
Ochorenie CNS
Cholangitída
Chronická infekcia horných ciest dýchacích
Hlboké mykotické infekcie:
– kryptokokóza
– kokcidioidomykóza
– histoplazmóza
– blastomykóza
FeLV
FIV
IBD
Ochorenie pečene
Mykoplazma (infekčná anémia mačiek)
Neoplázia (lymfóm)
Pankreatitída
Zlyhanie obličiek
Systémové infekčné choroby:
– toxoplazmóza
– nokardióza
– aktinomykóza

Doporučujem voľné pokračovanie tohto článku s bližším popisom niektorých diferenciálnych diagnóz.

Rusko predstavuje prvú vakcínu proti koronavírusu na svete pre psy, mačky a ďalšie zvieratá

31.3.2021, Robyn Dixon a Miriam Berger
Pôvodný článok: Russia unveils world’s first coronavirus vaccine for dogs, cats and other animals

Rusko zaregistrovalo prvú vakcínu proti koronavírusu na svete pre psy, mačky, norky, líšky a ďalšie zvieratá, uviedol v stredu tamojší dozorný orgán pre poľnohospodárstvo.

Vakcínu nazvanú Carnivak-Cov vyvinuli vedci z Federálnej služby pre veterinárny a fytosanitárny dohľad, známej tiež ako Rosseľchoznadzor, uviedla ruská agentúra Tass News.

Odvtedy, čo mnohí vedci tvrdia, že vírus spôsobujúci Covid-19 pôvodne preskočil z netopiera na človeka, prípadne sa tak stalo aj prostredníctvom iného sprostredkovateľa, boli na celom svete zaznamenané infekcie u zvierat, od zoologických záhrad až po farmy s norkami.

Zostáva nejasné, ako ľahko sa vírus môže prenášať medzi zvieratami a ľuďmi. Po opakovaných nákazách medzi norkami na farmách v Dánsku a inde v Európe ale boli preventívne zabité milióny kožušinových zvierat, aby sa zabránilo prípadnému prenosu. Vedci sa obzvlášť obávali prípadných mutovaných variantov vírusu vyvinutých u noriek a iných zvierat, ktoré by mohli infikovať ľudí.

Rusko už v podmienečne schválilo tri vakcíny proti koronavírusu pre humánne použitie. Zástupca vedúceho spoločnosti Rosseľchoznadzor Konstantin Savenkov v stredu uviedol, že pôjde o prvú schválenú vakcínu na svete určenú pre široké očkovanie zvierat.

Vakcína by sa mohla hromadne vyrábať už v apríli, hoci agentúra neuviedla, kedy bude dostupná na trhu. Vyrábať ju bude ruské Federálne stredisko pre zdravie zvierat, ktoré je najväčším výrobcom veterinárnych produktov v Rusku.

„Carnivak-Cov, sorbátom deaktivovaná vakcína proti koronavírusovej infekcii… je prvý a jediný produkt na svete pre prevenciu Covid-19 u zvierat,“ uviedol Savenkov pre Tass News.

Dve americké spoločnosti, veterinárna farmaceutická spoločnosť so sídlom v New Jersey, Zoetis a Medgene Labs z Južnej Dakoty, tiež vyvíjajú vakcíny proti koronavírusu pre použitie u noriek a iných zvierat.

Ruskí bádatelia zahájili klinické testy v októbri 2020, a vakcínu okrem iných zvierat testovali aj na psoch, mačkách, norkách a líškach obyčajných i polárnych. Masová výroba vakcíny by sa podľa Savenkova mohla začať v apríli 2021.

„Výsledky výskumu nám dávajú dôvody k predpokladu, že vakcína je bezpečná a má silný imunogénny účinok,“ uviedol Savenkov.

Očakáva sa, že vakcína vytvorí protilátkovú rezistenciu, ktorá potrvá najmenej šesť mesiacov.

Savenkov pre Tass News uviedol, že „domáce chovateľské podniky a obchodné firmy z Grécka, Poľska a Rakúska“ plánujú nákup vakcíny, zatiaľ čo o ňu prejavili záujem aj spoločnosti zo Spojených štátov, Kanady a Singapuru.

Ruská vakcína proti koronavírusu pre humánne použitie doteraz nebola schválená ani v Spojených štátoch a ani v Európe.

Začiatkom tohto roka bola vakcína Zoetis podaná skúšobne deviatim infikovaným ľudoopom v zoo v San Diegu, ktorí sa odvtedy uzdravili.

Mačací koronavírus a FIP u nedomestikovaných druhov mačiek

1.4.2021, Preklad 8.5.2021
Stout, Alison E., André, Nicole M., and Whittaker, Gary R.
Pôvodný článok: FELINE CORONAVIRUS AND FELINE INFECTIOUS PERITONITIS IN NONDOMESTIC FELID SPECIES

Abstrakt

Mačací koronavírus (FCoV) je hlásený po celom svete a je známe, že spôsobuje ochorenie domestikovaných i nedomestikovaných druhov mačiek. Aj keď FCoV často vedie k miernemu či subklinickému ochoreniu, malá podskupina mačiek podľahne smrteľnej systémovej chorobe, mačacej infekčnej peritonitíde (FIP). Vypuknutie FIP u gepardov (Acinonyx jubatus) v zoologickej zbierke upozornilo na zničujúci účinok zavlečenia FCoV do skupiny zvierat. Okrem gepardov bola FIP zaznamenaná aj u európskych divých mačiek (Felis silvestris), tigra (Panthera tigris), leva horského (Puma concolor) a leva (Panthera leo). Tento článok je prehľadom hlásených prípadov FIP u nedomestikovaných druhov mačiek a upozorňuje na FCoV v populáciách nedomestikovaných mačiek.

Úvod

Infekčné choroby predstavujú významné nebezpečenstvo pre zachovanie voľne žijúcich živočíchov.74 Fragmentácia pôdy predstavuje potenciál pre umožnenie vzniku oblastí s vyššou hustotou populácie zvierat v prirodzených biotopoch, ako je obvyklé, a rozširovanie miest môže zvýšiť interakciu divých mačkovitých šelem s domácimi mačkami.15 Nedávno pandémia COVID-19 upozornila i na nedomestikované mačkovité šelmy, keď bol koronavírus SARS-CoV-2 prvýkrát zistený u tigra (Panthera tigris) v zoologickej záhrade v Bronxe v New Yorku, NY, s následnými prípadmi diagnostikovanými u iných mačiek chovaných v zajatí v tej istej zoo; 122 hoci sa stav týchto zvierat od diagnózy zlepšil, koronavírusy zostávajú predmetom záujmu o zdravie mačiek v domácom aj nedomácom prostredí.

Infekcie mačacím koronavírusom sú v populácii domácich mačiek v súčasnosti výrazne rozšírené. 17 U väčšiny domácich mačiek je ochorenie buď asymptomatické, alebo sa prejavuje ako samolimitujúca mierna hnačka. 83 U malej podskupiny mačiek však dochádza k „vnútornej mutácii“, ktorá vedie k tropizmu makrofágov46, pričom tieto mačky podľahnú systémovému ochoreniu známemu ako FIP. 9,60,99 FCoV klasifikovaný ako alfacoronavírus (druh alfacoronavírus-1) možno rozdeliť do dvoch biotypov: benígny mačací enterický koronavírus, alebo vírus smrteľnej infekčnej peritonitídy mačiek (FIPV) .82 Ďalej je možné vírus klasifikovať podľa sérotypu ako mačací koronavírus typu I alebo typu II.52 Tieto vírusové typy sa pôvodne rozlišovali na základe odlišnej protilátkovej odpovede, ale v poslednej dobe sa navrhuje, aby boli považované za odlišné genetické kmene na základe ich spike glykoproteínov.68 Vírusy typu II sú pri prírodných infekciách omnoho menej bežné, napriek tomu sa ľahšie izolujú a množia v systémoch bunkových kultúr, a tak boli charakterizované podrobnejšie. Vírus typu II sa považuje za odvodený z dvojitej homológnej rekombinácie medzi pôvodným typom FCoV a psím koronavírusom.46

Vírusový spike (hrotový) proteín je hnacím mechanizmom bunkového tropizmu a patogenézy. Je známe, že FCoV receptorom typu II je mačacia aminopeptidáza (fAPN), 114 kým vírusy typu I majú odlišný a zatiaľ neznámy receptor. 21 Ďalšia vlastnosť rozlišujúca medzi týmito dvoma vírusovými typmi spočíva v procese aktivácie fúzie, vírus typu I obsahuje dva proteolytické aktivačné body(v miestach S1/S2 a S29), kým vírus typu II má jediný štiepny bod S29.52 Aj keď je známe, že oba sérotypy spôsobujú FIP, zostáva veľa otázok, pokiaľ ide o prirodzené správanie každého z nich, a o reakciu hostiteľa na infekciu.

LokáciaRokSéroprevalenciaReferencie
Južná Afrika1977–19781.1251
19823.528,45
19890/40a105
1999–2001105/10757
Serengeti/ Tanzánia19858.258,45
—24/3926
Keňa19854.128,25,45
Namíbia1999–200119/3957
1992–199821/7272
2002–20043/88b113
Botswana2008–20112.611
Winston, Oregon (epidémia)Pred júnom 19820/258,45
198335/358,45
198516/168,45
Severná Amerika198631/908,45
198749/918,45
198942/10226
1990106/16426
199124/3926
Anglicko19851.128,25,45
Tabuľka 1. Séroprevalencia FCoV u gepardov voľne sa pohybujúcich, i v zajatí.
a) Spárované vzorky celkovo 40 zvierat (80 vzoriek).
b) Došlo k opakovanému odberu vzoriek

Protilátkové reakcie proti FCoV typu I i typu II boli hlásené u mačiek v zajatí v Spojených štátoch, pričom správy špecificky uvádzajú reakciu proti FCoV typu I u gepardov, afrických levov (Panthera leo) a bengálskych tigrov (Panthera tigris tigris). ), a reakciu proti FCoV typu II u gepardov, jaguára (Panthera onca), afrického leva, bengálskych tigrov, rysov (Lynx canadensis), leopardov snežných (Panthera uncia) a leopardov afrických (Panthera pardus pardus) .56 V niektorých prípadoch sa FCoV typu II považuje za prenosnejší v porovnaní s vírusom typu I u domácich druhov mačiek, 123 aj keď kvôli prítomnosti oboch typov vírusov v študovanom zariadení sa to nepodarilo potvrdiť. Situácia u divých mačiek nie je známa.

Klinicky sa u mačiek vyskytujú dve klasické formy ochorenia, a to efúzna alebo neefúzna („vlhká“ alebo „suchá“). Vlhká forma FIP je charakterizovaná výpotkom v brušnej alebo hrudnej dutine, alebo obidvoch, či v perikardiálnych dutinách a suchá forma prítomnosťou pyogranulomatóznych lézií. Klinické príznaky spojené s biotypom FIPV však môžu byť dosť variabilné a nešpecifické. FCoV a FIP zostali významnou globálnou výzvou. Očkovanie sa neodporúča, čiastočne kvôli obavám z negatívnych výsledkov v dôsledku zosilnenia infekcie závislej od protilátok v prítomnosti neneutralizujúcich protilátok.125 Napriek sľubným počiatočným štúdiám 73,84 a ďalším možnostiam liečby stále nie sú k dispozícii schválené antivírusové terapie. Prevencia je zložitá a predsmrtná diagnostika je náročná. Súčasné metodológie PCR a sérologického testovania nerozlišujú medzi patologickými formami vírusu a titre protilátok sú nepredvídateľné. U mačacích populácií je vylučovanie FCoV často pozorované u zvierat, ktoré nie sú FIP pozitívne. Rovnako tak titre protilátok poskytujú iba dôkaz o predchádzajúcej expozícii a u domácich mačiek negatívny test na protilátky nevylučuje možnosť vylučovania FCoV.29 V závislosti na stanovení protilátok môže senzitivita a špecificita poskytnúť variabilnú pomoc pri diagnostike FIP, ako už zistili Felten a Hartmann.28 Zlatým štandardom pre diagnostiku FIP v súčasnosti zostáva imunohistochémia (IHC).28 Pri manažmente druhov chovaných v zajatí môže byť zvládnutie vírusu problematické, neistotu vnášajú aj obmedzené referenčné rozsahy analýzy krvi, scenáre vysokého stresu a možné nové prezentácie.

FIP a FCoV u nedomestikovaných druhov

Gepard (Acinonyx jubatus): V roku 1979 Horzinek a Osterhaus51 prvýkrát demonštrovali sérologickú odpoveď na FCoV u gepardov (tabuľka 1). V roku 1982 náhle vyšlo najavo, že gepardi môžu podľahnúť rovnakému závažnému ochoreniu ako domáce mačky infikované FCoV, keď došlo k prepuknutiu FIP u gepardov chovaných v zajatí v zoologickom parku vo Winstone v Oregone. 27,88 Prvý jedinec (8,5 roka stará samica) bola nedávno uvedená do stáda a mala nešpecifické príznaky choroby vrátane letargie, nechutenstva, dehydratácie, horúčky a ikteru s hematokritom 30%, hyperproteinémiou (9,1g/dl), leukocytózou a azotémiou.88 Pri posmrtnom vyšetrení bol prítomný ascites spolu s fibrinóznymi léziami priľahlými k brušným orgánom a tekutinou v hrudnej dutine.88 Vo viacerých orgánoch bola zaznamenaná petechiácia.88 V nasledujúcich mesiacoch, ktoré uplynili medzi týmto počiatočným prípadom a ďalšími prípadmi FIP, bola u iných gepardov pozorovaná občasná hnačka.27 Patológia vzoriek tkaniva od ďalších zvierat, ktoré uhynuli na FIP, odhalila multifokálne nekrotické lézie postihujúce brušné orgány (pečeň, obličky, slinivku, slezinu), lymfatycké uzliny a štítnu žľazu. Boli tiež pozorované erózie na tvári a ulcerózna glositída.27 Aj keď nie je možné vylúčiť kalicivírus, ktorý tiež spôsobuje tieto ulcerácie, je k dispozícii aj rad nedávnych prípadov s ľudskými pacientmi s COVID-19, u ktorých boli zaznamenané vredy jazyka v dôsledku infekcie.94 Longitudinálne sérologické monitorovanie po uvedení prvého prípadu FIP geparda preukázalo sérokonverziu a do roku 1983 každý gepard v parku bol sérologicky pozitívny.6,27,45 Počas tejto epidémie takmer 60% gepardov podľahlo FIP.25,45 Raná charakterizácia izolátu z geparda zahŕňala naočkovanie niekoľkých bunkových línií, vrátane mačacích obličkových buniek Crandall-Rees (CRFK), plodových buniek Felis catus-4 ( FCWF-4) a dvoch gepardích bunkových línií odvodených z obličiek (AjuKid234) alebo fibroblastov (AjuFib238).24 CRFK bunky vykazovali po naočkovaní gepardím izolátom podobné vlastnosti v porovnaní s dvoma kmeňmi FCoV typu I, zatiaľ čo bunky FCWF-4 boli voči izolátu menej permisívne. Naprieč gepardími bunkovými líniami bola prenosnosť buniek AjuKid234 nízka.24

Ďalšie prípady FIP boli popísané aj vo vrhu troch ulovených, približne 6-mesačných divokých gepardov, súčasne infikovaných Toxoplasma gondii.119 Údaje z klinickej patológie odhalili hypochrómnu anémiu, neutrofíliu, lymfopéniu a eozinopéniu s normálnou celkovou bielkovinou, ale zvýšeným alfa-2 globulínom a gama globulínmi.119 Okrem fibrinóznej peritonitídy a lézií ovplyvňujúcich brušné orgány boli zaznamenané aj edémy pľúc a krv v žalúdku.119 V tejto správe autori poukazujú na nedostatočnú stravu; ďalšie predisponujúce faktory však mohli zahŕňať stres z premiestnenia a genetickú predispozíciu.119 V patologickom výskume 31 mŕtvych gepardov chovaných v zajatí v Severnej Amerike sa FIP považovala za príčinu smrti u dvoch zvierat.71 Aj keď sa FIP nepopierateľne považovala za smrteľnú chorobu domácich mačiek, uvažovalo sa o mnohých hypotézach, vďaka ktorým boli gepardi obzvlášť náchylní na FIP, vrátane genetickej kontroly imunitnej odpovede, najmä rovnorodosti majoritného komplexu histokompatibility (MHC). 25,79 Analýza vírusu infikovaných gepardov preukázala mutácie delécie v géne 7a, aj keď je zaujímavé, že u geparda s FIP boli gény 7a aj 7b neporušené.58 Od prvého zaznamenaného prípadu FIP u geparda zostáva choroba sporadická aj napriek dôkazom o expozícii. Po počiatočných ohniskách epidémie FIP u gepardov neboli pozorované ďalšie ničivé straty, hoci výskum pokračuje aj naďalej.

Po vypuknutí FIP v Oregone monitorovanie FCoV odhalilo bežnú protilátkovú odpoveď na vírus (tabuľka 1). Pri prvotných vyšetreniach sa ukázalo, že vylučovanie stolice a titre protilátok sú často nezhodné.45 V štúdii s chovanými a voľne žijúcimi juhoafrickými gepardmi bola celková pozorovaná séroprevalencia 57% (169/298) v porovnaní s 36% (66/182) u tých, ktorí vylučovali vírusový antigén, hodnotený pomocou vnorenej polymerázovej reťazovej reakcie s reverznou transkripciou (RT/nPCR).57 U 49 zvierat, ktoré vylučovali vírusový antigén, 46 preukázalo protilátkovú odpoveď proti FCoV typu I, 45 vykazovalo protilátkovú odpoveď proti FCoV typu II a tri nevykazovali žiadnu protilátkovú odpoveď.57 Či bola táto vysoká séroprevalencia proti FCoV typu I aj II spôsobená množstvom cirkulujúcich vírusov, krížovou reaktivitou alebo iným faktorom, zostáva neznáme, ale tento nález je jedinečný. U juhoafrických gepardov, ktoré boli pozorované longitudinálne (n¼48), takmer pätina (n¼10) vylučovala antigén vo viac ako jednom časovom bode, a to aj po negatívnom teste po pozitívnom teste.57 V sérologickom výskume Munson a kol. v Namíbii72 boli častejšie séropozitívni samci, pričom séroprevalenciu vykazovalo 5/14 (36%) juvenilných samcov v porovnaní s 0/8 juvenilnými samicami a 13/37 (35%) dospelých samcov v porovnaní s 3/13 (23%) dospelými samicami.

Životný štýl a rizikové faktory voľne sa pohybujúcich druhov a druhov chovaných v zajatí sa môžu líšiť v závislosti od choroby. V štúdii medzi gepardmi v zajatí v Spojených štátoch tri z 22 zdravých gepardov vylučovali vírusový antigén (RT/nPCR) (tabuľka 2) .55 Z troch zvierat vylučujúcich vírusový antigén bolo jedno zviera pozitívne na protilátky proti FCoV typu I a ďalšie dve boli séronegatívne.55 U ďalších 19 zvierat bola protilátková odpoveď stanovená u 15 zvierat, z ktorých 10 nevykazovalo žiadne protilátky, štyri zvieratá boli séropozitívne proti vírusu typu I a jedno zviera bolo séropozitívne proti vírusom typu I i typu II.55 Avšak v ďalšej štúdii na 10 gepardoch, ktorí vírus nevylučovali, boli protilátky bežne proti vírusu typu II (5/10) v porovnaní s typom I (4/10) alebo oboma (1/10). Nesúlad v reakcii špecifických protilátok môže byť spôsobený zmenami v stratégiách riadenia, sezónnymi výkyvmi alebo rozdielmi v zaobchádzaní so vzorkami. Okrem toho rozdiely medzi protilátkovou odpoveďou a vylučovaním stolice predstavujú výzvu týkajúcu sa skutočného stavu choroby zvieraťa, a to tak u gepardov v zajatí, ako aj u divokých gepardov. S cieľom poskytnúť postup pri stratégii testovania boli počas 30 dní v USA odobraté vzorky fekálií od 25 gepardov v zajatí.38 Z týchto vzoriek fekálií bol vírusový antigén nájdený u 13% (4/31 vzoriek) vzoriek výkalov od jedného zvieraťa až po 93% (26/28 vzoriek) vzoriek od jedného zvieraťa.38

Bežný názovRodový druhFrekvencia antigénuReferencie
Mačka divá európskaFelis silvestris5/1544
Mačka divá africkáFelis lybica0/257
Mačka čiernonoháFelis nigripes0/157
Puma americkáPuma concolor0/2037
Mačka jaguarundiPuma yagouaroundi0/1637
  0/143
GepardAcinonyx jubatus22/9045
  66/18257
  3/2255
Mačka bengálskaPrionailurus bengalensis3/3412
Rys španielskyLynx pardinus0/2567
  0/6865
Rys ostrovidLynx lynx0/2102
OcelotLeopardus pardalis0/843
  0/2137
  0/1a62
MargayLeopardus wiedii0/1443
  0/737
Mačka pampováLeopardus colocolo0/2237
Mačka maloškvrnnáLeopardus [Oncifelis] geoffroyi0/143
  0/637
Ocelot stromovýLeopardus tigrinus0/2437
  0/2043
Rys karakalCaracal caracal0/257
Lev africkýPanthera leo0/157
Jaguár americkýPanthera onca0/6137
Leopard škvrnitýPanthera pardus0/257
Tabuľka 2. Detekcia antigénu FCoV u nedomestikovaných mačiek.
a) súčasť diagnostického vyšetrenia

Úloha perzistentných infekcií gepardov pri vývoji ulceróznej kolitídy a iných dlhodobých následkov zostáva pomerne nejasná a predstavuje potenciálnu oblasť pre potrebnú štúdiu.96,112 V roku 1993 Munson71 popísal u dvoch uhynulých gepardov s léziami charakteristickými pre FIP aj patologické zmeny v klkoch tenkého čreva u jedného zvieraťa (FIP nepovažoval za príčinu smrti ani u jedného geparda). Na vzorke deviatich gepardov s nekrotizujúcou kolitídou a hnačkou, ktoré vylučovali FCoV, šesť zvierat preukázalo protilátky len proti FCoV typu I, dve zvieratá vykazovali protilátky proti typu I aj typu II a jedno zviera nebolo pozitívne na protilátky žiadneho sérotypu.56 Ďalej sa FCoV diagnosticky hodnotila u mláďat gepardov vykazujúcich akútnu parézu zadných končatín, ale nepreukázala sa zjavná súvislosť so sérológiou a titre protilátok sa u jednotlivých zvierat v priebehu testovania menili.120,121 Ochorenie mačacej leukoencefalomyelopatie (LFL) u veľkých mačiek bolo rozpoznané u mnohých gepardov a dvoch ďalších druhov mačiek v Spojených štátoch. Pre ochorenie je charakteristická progresívna strata zraku, dezorientácia a ťažkosti s s príjmom potravy.7 V procese porozumenia etiológie LFL bolo 14 zvierat testovaných imunohistochemicky na FCoV, ale žiadne zvieratá v tejto malej podskupine sa neukázali ako pozitívne.7

Európska divá mačka (Felis silvestris): V roku 1993 Watt a kolegovia124 informovali o vypuknutí FIP u európskych divokých mačiek v uzavretej kolónii, ktorá existovala takmer 14 rokov a postihla iba samcov. Zaznamenali sa početné klinické príznaky spolu s multisystémovým orgánovým postihnutím vrátane pečene, obličiek, čreva, mozgu, pľúc, srdca a lymfatických tkanív.124 U dvoch mačiek boli zaznamenané respiračné príznaky.124 Nepodarilo sa zistiť, ako došlo k infikovaniu mačiek a považuje sa za nepravdepodobné, že by vírus mohla zavliecť túlavá mačka. To, či zdrojom kontaminácie mohol byť ošetrovateľ alebo ošetrovatelia v ZOO sa bližšie nezisťovalo. Taktiež sa nezistilo, či došlo k dlhodobému vylučovaniu vírusu. Je zaujímavé, že predchádzajúca štúdia McOrista a kol.64 nebola schopná identifikovať európske divé mačiatka ako sérologicky pozitívne na expozíciu FCoV nepriamym imunofluorescenčným testom (IFA) uskutočňovaným na plazme a namiereným proti kmeňu vírusu Wellcome (tabuľka 3). Najnovšie však Heddergott a kol.44 uviedli 47,1% (16/34) séroprevalencie vo vzorke 34 európskych divokých mačiek v Luxemburgu a zistil, že zvyšujúci sa vek je prediktorom stavu protilátok. Zo 16 séropozitívnych mačiek bolo 75% séropozitívnych na najmenej jednu ďalšiu bežnú mačaciu vírusovú infekciu (vírus mačacej leukémie, mačací parvovírus, mačací kalicivírus alebo mačací herpesvírus).44 Paradoxne, iná skupina európskych divých mačiek bola v Portugalsku séronegatívna (0/26), hoci tretina (5/15) fekálnych vzoriek bola pozitívnych na vírusový antigén (tabuľky 2, 3).19 Rozdiely v odbere a spracovaní vzoriek môžu vysvetliť niektoré nezrovnalosti; Medzi možné ďalšie rozdiely patria interakcie s domácimi a inými mačkovitými šelmami a povaha infekcií FCoV.

LokáciaRokSéroprevalenciaReferencie
Európska divá mačka (Felis silvestris), Škótsko1987–19890/2364
1992–19973/4914
Francúzsko1996–19972/5161
Luxembursko2001–201616/3444
Portugalsko1992–20070/2619
Puma americká (Puma concolor), USA1978–19914/21 (IFA) vs 0/32 (KELA)97a
1987–199016/5881
1990–200425/180b4
2005–20080/977
1990–200874/48033
BrazíliaUnknown3/5103
1998–20040/1830
Kanada1996–20010/1589
Lev africký(Panthera leo), Botswana2003–20050/2191
1992–200016/146b1
2008–20110/1411
2012–20140/1363
Namíbia1991–20015/2231
1999–200116/9857
Južná Afrika1987–19900/32106
1992–200043/3121
Tanzánia1984–1991177/311c47
Uganda1997–19990/1418
Zimbabwe1990–19980/411
Nemecko19890/1d116
Tabuľka 3. Séroprevalencia u nedomestikovaných druhov mačiek podľa krajiny a roku.
a) Felis concolor coryi.
b) Odhad zo stĺpcového grafu prezentovaného v štúdii.
c) Opakovaný odber vzoriek.
d) Súčasť diagnostického vyšetrenia.
IFA ¼ imunoflurescenčný test; KELA ¼ Kinetický enzýmovo viazaný imunosorbentný test.

Puma americká (Puma concolor): Bol popísaný prípad FIP u mladého samca pumy americkej, voľne sa pohybujúceho v Kalifornii, ktorý mal okrem zvačšených lymfatických uzlín tiež lézie v tenkom a hrubom čreve, srdci, pľúcach a mozgu. Je zaujímavé, že obličky sa javili histologicky normálne, ale vírusová RNA bola evidentná.108 Táto kazuistika je jedinečná pri demonštrácii FIP u voľne sa pohybujúceho zvieraťa, najmä u druhu, ktorý často žije osamelo. Riziko ďalších prípadov FIP u voľne sa pohybujúcich púm zostáva neznáme a ďalšie patogény, ako je zoonotické ochorenie Yersinia pseudotuberculosis, boli hlásené u púm s pyogranulomatóznymi léziami pečene a zápalu pobrušnice.3

Podľa sérologického výskumu kalifornských púm sa zdá, že séroprevalencia kolíše v období 18 rokov, počas ktorých sa odobrali vzorky.33 V roku 1992 boli odobraté iba tri vzorky, ale jedno zviera bolo pozitívne, zatiaľ čo v nasledujúcich 3 rokoch nebolo pozitívne žiadne zviera (n ¼46). Do roku 1996 začala séroprevalencia stúpať a vrchol dosiahla v rokoch 2000–2001 a po ďalšom období ochabovania dosiahla najvyššiu séroprevalenciu takmer 50% (n ¼ 29).33 Longitudálne údaje poskytnuté Foleym a kol.33 sú dôležité, pretože predchádzajúce roky nepredikujú budúcu séroprevalenciu. Dodatočná štúdia púm v Skalistých horách demonštruje vysoký stupeň korelácie medzi stavom protilátok u samíc a ich mláďat, a to aj vtedy, keď v čase odberu vzoriek boli mláďatá staré 4 mesiace alebo staršie.4 Štatistické modelovanie navyše naznačuje, že zvyšujúci sa vek a umiestnenie populácie sú rizikovými faktormi pre expozíciu FCoV.4 V Amerike boli hlásené aj ďalšie séroprevalencie (Tabuľka 3).

Tiger (Panthera tigris): FIP bola hlásená u 8-ročného samca tigra v zajatí v Rumunsku, u ktorého sa pôvodne prejavili nešpecifické klinické príznaky.49 Posmrtné vyšetrenie korešpondovalo s FIP a odhalilo uveitídu, výpotok v brušnej dutine a okrem perikarditídy aj seróznu tekutinu v perikardiálnom priestore.49 Farbenie makrofágov na FIP zodpovedalo diagnóze, pričom infikované makrofágy boli identifikované v pľúcach a iných tkanivách.49 Boli tiež zaznamenané depozity amyloidu.49 U mačiek s FIP došlo k zvýšeniu sérového amyloidu A, potenciálne podobne ako u ľudských pacientov so SARS-CoV-2,39,69 Je zaujímavé, že amyloidóza je často pozorovaná u mačiek čiernonohých (Felis nigripes); môžu teda existovať ďalšie hostiteľské faktory, ktoré vedú k prítomnosti amyloidových plakov u tigra.111 Napokon u tigra s FIP bola v slezine rozpoznaná skvapalnená nekróza, aj keď to nemusí byť špecifické pre infekciu FIP.49

Okrem opísaného prípadu FIP u tigra sa v prieskume talianskych zoologických záhrad v rokoch 2004 až 2015 zaznamenal jeden prípad peritonitídy u tigra; avšak to, či súvisel s infekciou FCoV, sa nepodarilo zistiť, a je to nepravdepodobné.101 Kompilácia dát o úmrtnosti tigrov chovaných v zajatí v Indii určila okrem enteritídy, gastritídy, gastroenteritídy, hepatitídy a žalúdočných vredov aj peritonitídu.107 Aj keď nebola zaznamenaná vírusová etiológia, choroby tráviaceho systému boli jednou z najbežnejších príčin úmrtnosti, a to aj počas monzúnového obdobia.107

U sibírskych alebo amurských tigrov (Panthera tigris altaica) bolo 43% zvierat (n ¼44) pozitívnych na prítomnosť protilátok FCoV (tabuľka 4).42 So séroprevalenciou nebolo spojené ani pohlavie, ani vek, aj keď longitudálny monitoring viedol k tomu, že sa tri ďalšie tigre stali séropozitívne.42 V jednej kazuistike sibírskeho tigra, ktorý podľahol morbillivírusovej infekcii, preukázala IFA prítomnosť protilátok proti FCoV, hoci to pravdepodobne neprispelo k úhynu zvieraťa.90 V kazuistike zajatého tigra amurského, ktorý sa pôvodne prezentoval s anorexiou a letargiou, bola IFA negatívna na FCoV; ďalšia diagnostika odhalila bakteriálny pyotorax.104 U iného sibírskeho tigra považovaného za klinicky zdravého bolo pozorované vylučovanie vírusu, ale bez protilátkovej odpovede.56

Z troch bengálskych tigrov umiestnených v tej istej inštitúcii vykazovali dva protilátkové reakcie na FCoV typu I aj typu II a tretí vykazoval protilátky proti typu II napriek tomu, že žiadne z týchto zvierat nevylučovalo vírusový antigén.56

Lev (Panthera leo): V roku 1970 Colby reportoval dva prípady FIP u levov.13 Aj keď táto počiatočná správa neposkytla žiadne klinické podrobnosti, v poslednej dobe bol opísaná očná forma FIP u 15-ročného leva v zajatí, u ktorej sa potvrdila slepota.75 Klinické patologické nálezy u pacienta vrátane anizocytózy a hypochromázie boli pre FIP nešpecifické, hoci PCV (HCT) bol na dolnej hranici normálu (31%) a celková plazmatická bielkovina na vyššej hranici normálu (7,8 g/dl), hodnoty bežne sa vyskytujúce u domácich pacientov s FIP.75 Histopatológia odhalila bilaterálnu panuveitídu a odlúčenie sietnice spolu s infiltrátom lymfocytov, plazmatických buniek a niekoľkých makrofágov.75 V prednej komore bol exsudát charakterizovaný ako eozinofilný a bielkovinový, a v mozgu sa našli lézie.75

U voľne sa pohybujúcich levov vo východnej Afrike bolo 57% vzoriek séra vyhodnotených ako dôkaz protilátkovej odpovede prostredníctvom IFA (tabuľka 3). 47 U afrického leva v zajatí sa už skôr pozorovalo vylučovanie FCoV, ale bez protilátkovej reakcie.56 Podobne dva ďalšie levy v rôznych inštitúciách aktívne vírus nevylučovali, ale vykazovali protilátkové odpovede.56,57 Je zaujímavé, že jeden z týchto levov vykazoval nízkoúrovňovú protilátkovú reakciu na FCoV typu I aj typu II.56. V prípade série levov s encefalitídou bol jeden lev testovaný na protilátky proti FCoV, ale javil sa negatívny.116 V štúdii „inbred“ levov v porovnaní s „outbred“ populáciou nebol vzťah medzi statusom príbuzenstva a protilátkami FCoV štatisticky významný.115 Longitudinálna štúdia levov v Serengeti preukázala každý rok vysoký stupeň variability, pokiaľ ide o séroprevalenciu, najmä u mladších zvierat.80 Tieto údaje navyše odhalili možné účinky na plodnosť a možnú súvislosť šírenia vírusu a vyššej hustoty populácie.80 Druhá longitudinálna štúdia ukázala vysoký stupeň séroprevalencie; vo väčšine vekových skupín viac ako 50% zvierat demonštrovalo séroprevalenciu a trend rastúcej séroprevalencie so zvyšujúcim sa vekom, až na niekoľko výnimiek34 (doplňujúce údaje zo štúdie). Séroprevalencia FCoV môže navyše predikovať výskyt kalicivírusu alebo vírusu mačacej imunodeficiencie (FIV).34

Bežný názovRodový druhSéroprevalenciaReferencie
Mačka púšťováFelis margarita0/151
ManulOtocolobus manul0/376
  0/6a59
Mačka amurskáPrionailurus bengalensis euptilura0/151
  0/241
Mačka iriomotskáPrionailurus bengalensis iriomotensis14/1770
Mačka plochočeláPrionailurus planiceps0/151
JaguarundiPuma yagouaroundi0/131
  0/1103
OcelotLeopardus pardalis1/1103
  1/130
  0/1031
  0/1235
MargayLeopardus wiedii0/151
  4/4103
Pampas catLeopardus colocolo1/1103
Mačka pampováLeopardus geoffroyi0/931
  1/40118
Ocelot stromovýLeopardus tigrinus0/230
Rys karakalCaracal2/257
  3/3113
ServalLeptailurus serval0/251
JaguárPanthera onca3/4103
Leopard škvrnitýPanthera pardus0/151
  1/257
  0/7113
  0/411
Tiger sumatrianskyPanthera tigris sondaica0/151
Tiger ussurijskýPanthera tigris altaica19/4442
Leopard snežnýPanthera uncia0/2b32
Tabuľka 4. Séroprevalencia u ďalších nedomestikovaných druhov mačiek.
a) Imunodeficientné zvieratá zo Zoo. b) Súčasť diagnostického spracovania, ktoré zahŕňalo dve spárované vzorky.

Serval (Leptailurus serval): Juan-Salle´s a kol.54 reportujú dva prípady FIP v skupine štyroch spolu žijúcich servalov. Prípad 1, dvojročný samec, prestal vstupovať do vnútorného priestoru, kde boli zvieratá bežne kŕmené. Nebolo zistené, či príčinou boli neurologické zmeny chovania, alebo nechutenstvo. Prípad 2 bola 8-ročná samica s implantátom melengesterol-acetátu, s nešpecifickými klinickými príznakmi a miernou brušnou distenziou.54 Prieskumná laparotómia odhalila brušný výpotok a lézie podobné FIP a klinická patológia preukázala leukocytózu a anémiu. Aj keď v prípade 1 neboli hlásené žiadne rozsiahle lézie, histológia odhalila fibrinopurulentnú ventrikulitídu; akumuláciu neutrofilov, fibrínu a makrofágov v mozgu; a ťažkú leptomeningitídu. V obličkách boli prítomné ložiskové pyogranulomatózne lézie.54 V prípade 2 boli pyogranulomatózne lézie okrem pyogranulomatóznej nekrotizujúcej splenitídy prítomné aj v mezentériu, pečeni a žlčníku.54

Rys: VanRensburg a Silkstone119 zmieňujú osobnú komunikáciu o FIP, ktorá postihla najmenej jedného rysa červeného. Z 25 rysov červených v Národnej rekreačnej oblasti Golden Gate neďaleko San Francisca v Kalifornii bol sérologicky pozitívny na FCoV jediný mestský rys červený (tabuľka 5).95 U dvoch rysov červených žijúcich v zajatí v americkej zoologickej zbierke bolo zaznamenané vylučovanie FCoV napriek absencii protilátkovej odpovede.56 Podobne v druhej americkej zoologickej zbierke jeden zdravý rys v zajatí vylučoval FCoV pri absencii protilátkovej odpovede, zatiaľ čo druhý rys vírus nevylučoval, ale vykazoval nízkoúrovňovú protilátkovú odpoveď proti FCoV typu II.56

Rys španielsky (Lynx pardinus) bol kedysi považovaný za jednu z najohrozenejších divých mačkovitých šeliem, a ako také by riziká infekcie FCoV mohli byť devastujúce. V jednej štúdii o 22 rysoch španielskych hodnotených kompetitívnym enzýmovým imunosorbentným testom (ELISA) na séroprevalenciu a 25 zvieratách hodnotených pomocou IFA alebo rýchlou imunochromotografiou, žiadne zvieratá nevykazovali známky expozície alebo aktívnej infekcie FCoV.67. Ďalšie štúdie však ukázali séroprevalenciu približne 26%, bez zjavného vzťahu medzi FCoV a FeLV.65 V samostatnej vzorke rysa španielskeho bolo 19/74 pozitívnych na expozíciu FCoV IFA, hoci 0/68 zvierat vylučovalo vírus vo výkaloch, čo sa hodnotilo pomocou RT- PCR.65 U dvoch ďalších rysov ostrovidov, u ktorých nebolo možné určiť príčinu smrti, nebolo ani u jedného zvieraťa zistené, že je IHC pozitívne na FCoV, napriek pankreatitíde a fibrinóznej serozitíde u jedného z týchto zvierat.102 Bol skúmaný aj vplyv FCoV na vývoj ďalších chorobných patológií vrátane membránovej glomerulonefritídy a vyčerpania lymfoidných buniek, avšak v žiadnej štúdii sa nezistila zjavná súvislosť s rozvojom chorôb.53,86

DruhLokáciaRokSéroprevalenciaReferencie
Rys španielsky (Lynx pardinus)Španielsko1989–20000/3798
  2003–200719/7465
  2004–20060/2267
Rys otrovid (Lynx lynx)Holandsko1977–19780/151
 Švédsko1993–19990/102100
Rys kanadský (Lynx canadensis)Severná Amerika1993–200112/2155
 Kanada20000/589a
Rys červený (Lynx rufus)USA1992–19951/2595
  Neznámy0/1b87
Tabuľka 5. Séroprevalencia FCoV podľa druhovej príslušnosti rysa.
a) Uvedený ako rys. b) Súčasť diagnostického spracovania.

Leopard (Panthera pardus): FIP bola reportovaná aj u leopardov v Nemecku.117 U troch afrických leopardov v dvoch zoologických inštitúciách v USA nebolo pozorované vylučovanie FCoV, ale všetky tri boli sérologicky pozitívne proti FCoV typu II.56 Z ďalších dvoch afrických leopardov v južnej Afrike, iba jedno zviera bolo séropozitívne a žiadne nevylučovalo vírus (tabuľky 2, 4).57

Divoká mačka bengálska (Prionailurus bengalensis): V rokoch 2005 až 2006 bolo 35 z celkových 1453 vzoriek rektálneho výteru získaných z ázijských leopardích mačiek na trhoch s divočinou pozitívnych na nový koronavírus, z ktorého sa zistilo, že spike proteín je fylogeneticky podobný spike proteínom iných alfakoravírusov.16 Tento vírus však vykazoval fylogenetický vzťah mimo skupinu, čo naznačuje, že sa oddelil na začiatku evolučnej histórie koronavírusov, alebo pravdepodobne predstavoval neidentifikovanú skupinu koronavírusov. Novšia analýza naznačuje, že spike proteín má vzťah s novo identifikovaným rodom deltacoronavírusu.110 Podľa predbežne publikovaných výsledkov RT seminested PCR testu zameraného na vírusovú polymerázu, 8,8% (3/34) divokých bengálskych mačiek bolo pozitívnych na pankoronavírus, s blízkym fylogenetickým vzťahom k FCoV.12 U iriomotských mačiek, poddruhu (Prionailurus bengalensis iriomotensis), väčšina zvierat (14/17) testovaných metódou ELISA proti psím koronavírusom preukázala prítomnosť protilátky (tabuľky 2, 4).70

Leopard obláčikový (Neofelis nebulosa): V prieskume príčin mortality nedomestikovaných mačkovitých šelem v biologickom parku Nandankanan v Bhubaneswar, Urísa, India sa peritonitída považovala za príčinu úhynu u jedného leoparda obláčikového; 92 avšak FCoV nebola skúmaná.

Leopard snežný (Panthera uncia): U zdravého snežného leoparda v zajatí bolo pozorované vylučovanie FCoV, aj keď nebola zjavná žiadna protilátková odpoveď.56 Naopak, u dvoch snežných leopardov v rôznych inštitúciách sa nepozorovalo vylučovanie vírusu, ale boli pozitívne na protilátky proti FCoV typu II. 56 V kazuistike asi 6 týždňov starého zajatého odchovaného samca leoparda snežného s neurologickým ochorením vrátane cerebelárnej degenerácie a encefalomyelopatie bol skúmaný FCoV ako potenciálna príčina, ale nakoniec nebol identifikovaný.109

Ocelot (Leopardus pardalis): Filoni a kol.30 uviedli jedného séropozitívneho, uloveného, zjavne zdravého divokého amazonského ocelota, ktorý bol tiež sérologicky pozitívny na mačací herpesvírus1, mačací kalicivírus, mačací parvovírus a Bartonella henselae. Toto jediné pozorovanie mohlo byť anomáliou a výsledkom iných základných zdravotných stavov. Je však zaujímavé, že protilátková odpoveď proti B. henselae bola spojená s protilátkou proti FCoV u domácich mačiek.40 Či podobná asociácia existuje aj u ocelotov alebo iných mačiek, nie je známe. Prirodzená cirkulácia FCoV v u izolovaných ocelotov sa napriek tomu javí ako vzácna(Tabuľky 2, 4).31,35

Mačka močiarna (Felis chaus): V prieskume úmrtnosti nedomestikovaných mačkovitých šeliem v biologickom parku Nandankanan sa peritonitída považovala za príčinu úhynu u jednej džungľovej mačky; 92 avšak FCoV sa neskúmal.

Jaguár americký (Panthera onca): FIP sa považovala za diferenciálnu diagnózu v kazuistike novorodeného jaguára s dýchacími ťažkosťami, ktorý prechádzal do ascitu.36 Potvrdzujúca diagnostika však neprebehla a po rozsiahlej liečbe sa mláďa uzdravilo.36 U dvoch zjavne zdravých jaguárov v zajatí, bolo pozorované vylučovanie FCoV; navyše jedno z týchto zvierat vykazovalo protilátkovú odpoveď na FCoV typu II. (Tabuľky 2, 4)56

Rys karakal (Caracal caracal): U štyroch karakalov bola preukázaná protilátková odpoveď, hoci ani jedno zviera nevylučovalo FCoV (Tabuľky 2, 4).56,57

Diskusia

Mačací koronavírus predstavuje popri ďalších infekčných chorobách výzvu pre snahu o zachovanie nedomestikovaných mačkovitých šeliem.74 Dôveryhodné zázanamy o FIP existujú u siedmich nedomestikovaných druhov mačkovitých šeliem a 15 druhov preukázalo séroprevalenciu. Uvoľňovanie antigénov je však pozorované pomerne zriedkavo. Screening a diagnostické testovanie sú náročné a je stále ťažké určiť zdroj infekcie FCoV. V prípadoch, ktoré uviedli Watt a kol.124 a Juan-Salle a kol., 54 sa považovalo za nepravdepodobné, že by zdrojom nákazy bola túlavá mačka. Či teda vírus u týchto zvierat neustále cirkuloval, alebo či bol vírus zavlečený iným spôsobom, zostáva stále neznáme. Vedie to tak k potrebe byť vždy ostražitý, pokiaľ ide o biologickú bezpečnosť, najmä v prípade ohrozených zvierat. Použitie výkalov pre identifikáciu FCoV vytvára stratégiu ľahkého odberu vzoriek od voľne žijúcich zvierat, i zvierat v zajatí; môže však dôjsť k inhibícii PCR z fekálneho obsahu.20 Okrem toho zradný nástup u niektorých prípadov FIP často vyžaduje skúmanie potenciálu alebo expozície infekcie FCoV. Spektrum klinických prejavov popri „štandardnom klinickom obraze“, zahŕňa i dermatologicke lézie, 10,93 myokarditídy 22 a choroby horných ciest dýchacích.2

Z hlásení o prepuknutí FIP u nedomestikovaných mačiek vyplynulo, že u samcov je v porovnaní so samicami pravdepodobne vyššie riziko, podobne, ako sa pozorovalo aj u domácich mačiek. FIP sa zistila iba u európskych divokých mačiek mužského pohlavia a prostredníctvom jednotlivých hlásení vieme o FIP u horského leva, leva a tigra, ktorá postihla iba samcov. 49,75,108, 124 U domácich mačiek sú samci v prípadoch FIP tiež zastúpení nadmerne.78 Okrem toho i u ľudí infekcia SARSCoV-2 viedla k vážnejším následkom u mužov v porovnaní so ženami.66

Zatiaľ čo útulky a chovateľské stanice predstavujú optimálne miesto pre šírenie FCoV, cirkuláciu FCoV u voľne sa pohybujúcich druhov možno zlepšiť solitérnym životným štýlom niektorých z týchto druhov. Vírus prežije v prostredí relatívne krátky čas, takže prenos sa uskutočňuje predovšetkým priamymi alebo nepriamymi interakciami vrámci druhu alebo s inými mačkovitými šelmami. V niektorých prípadoch môžu byť domáce mačky zdrojom koristi pre väčšie nedomestikované mačkovité šelmy. Či by mohlo dôjsť k nákaze týmto spôsobom, nie je známe, ale mohla by to byť príčina určitých protilátkových odpovedí alebo vylučovania antigénu vo výkaloch. Zmeny biotopov vrátane fragmentácie a rozširovania miest môžu okrem expozície domácich mačiek viesť aj k nárastu interakcií vrámci rovnakého druhu vo voľnej prírode.

Aj keď je testovanie protilátok užitočné pre detekciu predchádzajúcej expozície, a to aj u nedomestikovaných druhov, seronegatívny test nie vždy znamená absenciu vylučovania vírusu.38,56 Tento nesúlad predstavuje výzvu pre pochopenie skutočných úrovní FCoV cirkulujúceho v populáciách divokých mačiek. Niekoľko stratégií testovania preukázalo schopnosť detegovať vylučovanie vírusov s vysokou mierou spoľahlivosti vrátane uskutočniteľnej možnosti získania piatich vzoriek za sebou.38 Ak vezmeme do úvahy kriticky ohrozené druhy, musia byť jednotlivci pred uvedením k jedincom rovnakého druhu adekvátne testovaní, spolu s minimalizáciou stresu, zbytočnou anestéziou atď. Postupné testovanie vzoriek výkalov sa prevádzalo u zvierat v zajatí a podobné stratégie môžu byť užitočné pre pochopenie prítomnosti alebo neprítomnosti FCoV i v populáciách divokých zvierat.

Poďakovanie: Autori si veľmi cenia členov laboratória Whittaker Lab a členov Fondu na ochranu gepardov za prínosnú diskusiu pri príprave tohto rukopisu. Práca Dr. Stouta je podporovaná školiacim programom komparatívnej medicíny National Institutes of Health (T32OD011000). Práca v autorskom laboratóriu (GRW) je čiastočne financovaná z Cornell Feline Health Center a Winn Feline Foundation.

Použitá literatúra

  1. Alexander KA, McNutt JW, Briggs MB, StandersPE, Funston P, Hemson G, Keet D, van Vuuren M. Multi-host pathogens and carnivore management in southern Africa. Comp Immunol Microbiol Infect Dis. 2010;33(3):249–265.
  2. Andre´ NM, Miller AD, Whittaker GR. Feline infectious peritonitis virus-associated rhinitis in a cat. J Feline Med Surg Open Rep. 2020;6(1):1–6.
  3. Bernard JM, Newkirk KM, McRee AE, Whittemore JC, Ramsay EC. Hepatic lesions in 90 captive nondomestic felids presented for autopsy. Vet Pathol. 2015;52(2):369–376.
  4. Biek R, Ruth TK, Murphy KM, Anderson CR,Johnson M, DeSimone R, Gray R, Hornocker MG, Gillin CM, Poss M. Factors associated with pathogen seroprevalence and infection in rocky mountain cougars. J Wildl Dis. 2006;42(3):606–615.
  5. Biek R, Zarnke RL, Gillin C, Wild M, Squires JR,Poss M. Serologic survey for viral and bacterial infections in western populations of Canada lynx (Lynx canadensis). J Wildl Dis. 2002;38(4):840–845.
  6. Briggs MB, Evermann JF, McKeirnan AJ. Felineinfectious peritonitis: an update of a captive cheetah population. Feline Pract. 1986;16(2):13–16.
  7. Brower AI, Munson L, Radcliffe RW, Citino SB,Lackey LB, Van Winkle TJ, Stalis I, Terio KA, Summers BA, de Lahunta A. Leukoencephalomyelopathyof mature captive cheetahs and other large felids: a novel neurodegenerative disease that came and went? Vet Pathol. 2014;51(5):1013–1021.
  8. Brown EW, Olmsted RA, Martenson JS, O’BrienSJ. Exposure to FIV and FIPV in wild and captive cheetahs. Zoo Biol. 1993;12(1):135–142.
  9. Brown MA, Troyer JL, Pecon-Slattery J, RoelkeME, O’Brien SJ. Genetics and pathogenesis of feline infectious peritonitis virus. Emerg Infect Dis. 2009; 15(9):1445–1452.
  10. Cannon MJ, Silkstone MA, Kipar AM. Cutaneous lesions associated with coronavirus-induced vasculitis in a cat with feline infectious peritonitis and concurrent feline immunodeficiency virus infection. J Feline Med Surg. 2005;7(4):233–236.
  11. Chaber A-L, Cozzi G, Broekhuis F, Hartley R,JW McNutt. Serosurvey for selected viral pathogens among sympatric species of the African large predator guild in northern Botswana. J Wildl Dis. 2017;53(1): 170–175.
  12. Chen C-C, Chang A-M, Chen W-J, Chang P-J,Lai Y-C, Lee H-H. Molecular survey for selected viral pathogens in wild leopard cats (Prionailurus bengalensis) in Taiwan with an emphasis on the spatial and temporal dynamics of carnivore protoparvovirus 1. BioRxiv [Internet]. 2020.02.21.960492; doi:https://doi. org/10.1101/2020.02.21.960492
  13. Colby ED. Feline infectious peritonitis. Vet MedSmall Anim Clin. 1970;65(8):783–786.
  14. Daniels MJ, Golder MC, Jarrett O, MacDonaldDW. Feline viruses in wildcats from Scotland. J Wildl Dis. 1999;35(1):121–124.
  15. Daszak P, Cunningham A, Hyatt A. Emerginginfectious diseases of wildlife—threats to biodiversity and human health. Science. 2000;287(5452):443–449.
  16. Dong BQ, Liu W, Fan XH, Vijaykrishna D, TangXC, Gao F, Li LF, Li GJ, Zhang JX, Yang LQ, Poon LLM, Zhang SY, Peiris JSM, Smith GJD, Chen H, Guan Y. Detection of a novel and highly divergent coronavirus from Asian leopard Cats and Chinese ferret badgers in southern China. J Virol. 2007; 81(13):6920–6926.
  17. Drechsler Y, Alcaraz A, Bossong FJ, CollissonEW, Diniz PPVP. Feline coronavirus in multicat environments. Vet Clin North Am Small Anim Pract. 2011;41(6):1133–1169.
  18. Driciru M, Siefert L, Prager KC, Dubovi E,Sande R, Princee F, Friday T, Munson L. A serosurvey of viral infections in lions (Panthera leo), from Queen Elizabeth National Park, Uganda. J Wildl Dis. 2006; 42(3):667–671.
  19. Duarte A, Fernandes M, Santos N, Tavares L.
    Virological survey in free-ranging wildcats (Felis silvestris) and feral domestic cats in Portugal. Vet Microbiol. 2012;158(3–4):400–404.
  20. Dye C, Helps CR, Siddell SG. Evaluation of realtime RT-PCR for the quantification of FCoV shedding in the faeces of domestic cats. J Feline Med Surg. 2008; 10(2–3):167–174.
  21. Dye C, Temperton N, Siddell SG. Type I felinecoronavirus spike glycoprotein fails to recognize aminopeptidase N as a functional receptor on feline cell lines. J Gen Virol. 2007;88(Pt 6):1753–1760.
  22. Ernandes MA, Cantoni AM, Armando F, Corradi A, Ressel L, Tamborini A. Feline coronavirusassociated myocarditis in a domestic longhair cat. JFMS Open Rep. 2019;5(2):1–5.
  23. Evermann JF, Burns G, Roelke ME, McKeirnanAJ, Greenlee A, Ward AC, Pfeifer ML. Diagnostic features of an epizootic of feline infectious peritonitis in captive cheetahs. In: Proc Am Assoc Vet Lab Diagn; 1983. 26:365–382.
  24. Evermann JF, Heeney JL, McKeirnan AJ,O’Brien SJ. Comparative features of a coronavirus isolated from a cheetah with feline infectious peritonitis. Virus Res. 1989;13(1):15–27.
  25. Evermann JF, Heeney JL, Roelke ME,
    McKeirnan AJ, O’Brien SJ. Biological and pathological consequences of feline infectious peritonitis virus infection in the cheetah. Arch Virol. 1988;102(3–4): 155–171.
  26. Evermann JF, Laurenson MK, McKeirnan AJ,Caro TM. Infectious disease surveillance in captive and free-living cheetahs: an integral part of the species survival plan. Zoo Biol. 1993;12(1):125–133.
  27. Evermann JF, Roelke ME, Briggs MB. Felinecoronavirus infections of cheetahs: clinical and diagnostic features. Feline Pract. 1986;16(3):21–28.
  28. Felten S, Hartmann K. Diagnosis of felineinfectious peritonitis: a review of the current literature. Viruses. 2019;11(11):1068.
  29. Felten S, Klein-Richers U, Hofmann-LehmannR, Bergmann M, Unterer S, Leutenegger CM, Hartmann K. Correlation of feline coronavirus shedding in feces with coronavirus antibody titer. Pathogens. 2020; 9(8):598.
  30. Filoni C, Cata˜o-Dias JL, Bay G, Durigon EL,Jorge RSP, Lutz H, Hofmann-Lehmann R. First evidence of feline herpesvirus, calicivirus, parvovirus, and Ehrlichia exposure in Brazilian Free-ranging felids. J Wildl Dis. 2006;42(2):470–477.
  31. Fiorello CV, Noss AJ, Deem SL, Maffei L,Dubovi EJ. Serosurvey of small carnivores in the Bolivian Chaco. J Wildl Dis. 2007;43(3):551–557.
  32. Fix AS, Riordan DP, Hill HT, Gill MA, EvansMB. Feline panleukopenia virus and subsequent canine distemper virus infection in two snow leopards (Panthera uncia). J Zoo Wildl Med. 1989;20(3):273–281.
  33. Foley JE, Swift P, Fleer KA, Torres S, GirardYA, Johnson CK. Risk factors for exposure to feline pathogens in California mountain lions (Puma concolor). J Wildl Dis. 2013;49(2):279–293.
  34. Fountain-Jones NM, Packer C, Jacquot M,Blanchet FG, Terio K, Craft ME. Endemic infection can shape exposure to novel pathogens: pathogen cooccurrence networks in the Serengeti lions. Ecol Lett. 2019;22(6):904–913.
  35. Franklin SP, Kays RW, Moreno R, TerWee JA,Troyer JL, VandeWoude S. Ocelots on Barro Colorado Island are infected with feline immunodeficiency virus but not other common feline and canine viruses. J Wildl Dis. 2008;44(3):760–765.
  36. Fransen DR. Feline infectious peritonitis in aninfant jaguar. In: Proc Am Assoc Zoo Vet; 1974. 261– 264.
  37. Furtado MM, Taniwaki SA, de Barros IN,Branda˜o PE, Cata˜o-Dias JL, Cavalcanti S, Cullen L, Filoni C, Almeida Ja´como AT de, Jorge RSP, Silva NDS, Silveira L, Ferreira Neto JS. Molecular detection of viral agents in free-ranging and captive neotropical felids in Brazil. J Vet Diagn Invest. 2017;29(5):660– 668.
  38. Gaffney PM, Kennedy M, Terio K, Gardner I,Lothamer C, Coleman K, Munson L. Detection of feline coronavirus in cheetah (Acinonyx jubatus) feces by reverse transcription-nested polymerase chain reaction in cheetahs with variable frequency of viral shedding. J Zoo Wildl Med. 2012;43(4):776–786.
  39. Giordano A, Spagnolo V, Colombo A, PaltrinieriS. Changes in some acute phase protein and immunoglobulin concentrations in cats affected by feline infectious peritonitis or exposed to feline coronavirus infection. Vet J. 2004;167(1):38–44.
  40. Glaus T, Hofmann-Lehmann R, Greene C,Glaus B, Wolfensberger C, Lutz H. Seroprevalence of Bartonella henselae infection and correlation with disease status in cats in Switzerland. J Clin Microbiol. 1997;35(11):2883–2885.
  41. Goncharuk MS, Kerley LL, Naidenko SV, Rozhnov VV. Prevalence of seropositivity to pathogens in small carnivores in adjacent areas of Lazovskii Reserve. Biol Bull Russ Acad Sci. 2012;39(8):708–713.
  42. Goodrich JM, Quigley KS, Lewis JCM, AstafievAA, Slabi EV, Miquelle DG, Smirnov EN, Kerley LL, Armstrong DL, Quigley HB, Hornocker MG. Serosurvey of free-ranging Amur tigers in the Russian Far East. J Wildl Dis. 2012;48(1):186–189.
  43. Guimaraes AMS, Branda˜o PE, Moraes W de,Cubas ZS, Santos LC, Villarreal LYB, Robes RR, Coelho FM, Resende M, Santos RCF, Oliveira RC, Yamaguti M, Marques LM, Neto RL, Buzinhani M, Marques R, Messick JB, Biondo AW, Timenetsky J. Survey of feline leukemia virus and feline coronaviruses in captive neotropical wild felids from southern Brazil. J Zoo Wildl Med. 2009;40(2):360–364.
  44. Heddergott M, Steeb S, Osten-Sacken N, Steinbach P, Schneider S, Pir JP, Mu¨ller F, Pigneur L-M, Frantz AC. Serological survey of feline viral pathogens in free-living European wildcats (Felis s. silvestris) from Luxembourg. Arch Virol. 2018;163(11):3131–3134.
  45. Heeney JL, Evermann JF, McKeirnan AJ, Marker-Kraus L, Roelke ME, Bush M, Wildt DE, Meltzer DG, Colly L, Lukas J. Prevalence and implications of feline coronavirus infections of captive and freeranging cheetahs (Acinonyx jubatus). J Virol. 1990; 64(5):1964–1972.
  46. Herrewegh AAPM, Smeenk I, Horzinek MC,Rottier PJM, Groot RJ de. Feline coronavirus type II strains 79-1683 and 79-1146 originate from a double recombination between feline coronavirus type I and canine coronavirus. J Virol. Ame Soc Microbiol J. 1998;72(5):4508–4514.
  47. Hofmann-Lehmann R, Fehr D, Grob M, ElgizoliM, Packer C, Martenson JS, O’Brien SJ, Lutz H.
    Prevalence of antibodies to feline parvovirus, calicivirus, herpesvirus, coronavirus, and immunodeficiency virus and of feline leukemia virus antigen and the interrelationship of these viral infections in freeranging lions in east Africa. Clin Diagn Lab Immunol. 1996;3(5):554–562.
  48. Holzworth J. Some important disorders of cats.Cornell Vet. 1963;53:157–160.
  49. Horhogea C, Lazar M. Immunohistochemicalmethods to diagnose atraumatic spleen rupture in feline infectious peritonitis of tiger (Panthera tigris). Rev Chim Buchar. 2017;68(5):1055.
  50. Horzinek MC, Osterhaus AD. The virology andpathogenesis of feline infectious peritonitis. Brief review. Arch Virol. 1979;59(1–2):1–15.
  51. Horzinek MC, Osterhaus ADME. Feline infectious peritonitis: a worldwide serosurvey. Am J Vet Res. 1979;40(10):1487–1492.
  52. Jaimes JA, Millet JK, Stout AE, Andre´ NM, Whittaker GR. A tale of two viruses: the distinct spike glycoproteins of feline coronaviruses. Viruses. 2020; 12(1):83.
  53. Jime´nez A, Sa´nchez B, Pe´rez Alenza D, Garcı´a P, Lo´pez JV, Rodriguez A, Mun˜oz A, Martı´nez F, Vargas A, Pen˜a L. Membranous glomerulonephritis in the Iberian lynx (Lynx pardinus). Vet Immunol Immunopathol. 2008;121(1–2):34–43.
  54. Juan-Salle´s C, Domingo M, Herra´ez P, Ferna´ndez A, Segale´s J, Ferna´ndez J. Feline infectious peritonitis in servals (Felis serval). Vet Rec. 1998; 143(19):535–536.
  55. Kennedy M, Citino S, Dolorico T, McNabb AH,Moffat AS, Kania S. Detection of feline coronavirus infection in captive cheetahs (Acinonyx jubatus) by polymerase chain reaction. J Zoo Wildl Med. 2001;
    32(1):25–30.
  56. Kennedy M, Citino S, McNabb AH, Moffatt AS,Gertz K, Kania S. Detection of feline coronavirus in captive Felidae in the USA. J Vet Diagn Invest. 2002; 14(6):520–522.
  57. Kennedy M, Kania S, Stylianides E, BertschingerH, Keet D, van Vuuren M. Detection of feline coronavirus infection in southern African nondomestic felids. J Wildl Dis. 2003;39(3):529–535.
  58. Kennedy MA, Moore E, Wilkes RP, Citino SB,Kania SA. Analysis of genetic mutations in the 7a7b open reading frame of coronavirus of cheetahs (Acinonyx jubatus). Am J Vet Res. 2006;67(4):627–632.
  59. Ketz-Riley CJ, Ritchey JW, Hoover JP, JohnsonCM, Barrie MT. Immunodeficiency associated with multiple concurrent infections in captive Pallas’ cats (Otocolobus manul). J Zoo Wildl Med. 2003;34(3):239– 245.
  60. Kipar A, Meli ML. Feline infectious peritonitis:
    still an enigma? Vet Pathol. 2014;51(2):505–526.
  61. Leutenegger CM, Hofmann-Lehmann R, RiolsC, Liberek M, Worel G, Lups P, Fehr D, Hartmann M, Weilenmann P, Lutz H. Viral infections in free-living populations of the European wildcat. J Wildl Dis. 1999; 35(4):678–686.
  62. Masot AJ, Gil M, Risco D, Jime´nez OM, Nu´nez˜ JI, Redondo E. Pseudorabies virus infection (Aujeszky’s disease) in an Iberian lynx (Lynx pardinus) in Spain: a case report. BMC Vet Res. 2016;13(1):6.
  63. McDermid KR, Snyman A, Verreynne FJ, Carroll JP, Penzhorn BL, Yabsley MJ. Surveillance for viral and parasitic pathogens in a vulnerable African lion (Panthera leo) population in the Northern Tuli Game Reserve, Botswana. J Wildl Dis. 2017;53(1):54–61.
  64. McOrist S, Boid R, Jones TW, Easterbee N,Hubbard AL, Jarrett O. Some viral and protozool diseases in the European wildcat (Felis silvestris). J Wildl Dis. 1991;27(4):693–696.
  65. Meli ML, Cattori V, Martı´nez F, Lo´pez G, Vargas A, Simo´n MA, Zorrilla I, Mun˜oz A, Palomares F, Lo´pez-Bao JV, Pastor J, Tandon R, Willi B, Hofmann-Lehmann R, Lutz H. Feline leukemia virus and other pathogens as important threats to the survival of the critically endangered Iberian lynx (Lynx pardinus). PLOS ONE. 2009;4(3):e4744.
  66. Meng Y, Wu P, Lu W, Liu K, Ma K, Huang L,Cai J, Zhang H, Qin Y, Sun H, Ding W, Gui L, Wu P.
    Sex-specific clinical characteristics and prognosis of coronavirus disease-19 infection in Wuhan, China: a retrospective study of 168 severe patients. PLOS Pathog. 2020;16(4):e1008520.
  67. Milla´n J, Candela MG, Palomares F, Cubero MJ, Rodrı´guez A, Barral M, de la Fuente J, Almerı´a S, Leo´n-Vizcaı´no L. Disease threats to the endangered Iberian lynx (Lynx pardinus). Vet J. 2009;182(1):114– 124.
  68. Millet JK, Whittaker GR. Host cell proteases: critical determinants of coronavirus tropism and pathogenesis. Virus Res. 2015;202(2015):120–134.
  69. Mo X-N, Su Z-Q, Lei C-L, Chen D-F, Peng H,Chen R-C, Sang L, Wu H-K, Li S-Y. Serum amyloid A is a predictor for prognosis of COVID-19. Respirology. 2020;25(7):764–765.
  70. Mochizuki M, Akuzawa M, Nagatomo H. Serological survey of the Iriomote cat (Felis iriomotensis) in Japan. J Wildl Dis. 1990;26(2):236–245.
  71. Munson L. Diseases of captive cheetahs (Acinonyx jubatus): results of the cheetah research council pathology survey, 1989–1992. Zoo Biol. 1993;12(1): 105–124.
  72. Munson L, Marker L, Dubovi E, Spencer JA,
    Evermann JF, O’Brien SJ. Serosurveyof viral infections in free-ranging Namibian cheetahs (Acinonyx jubatus). J Wildl Dis. 2004;40(1):23–31.
  73. Murphy BG, Perron M, Bauer K, Park Y,Eckstrand C, Liepnieks M, Pedersen NC. The nucleoside analog GS-441524 strongly inhibits feline infectious peritonitis (FIP) virus in tissue culture and experimental cat infection studies. Vet Microbiol. 2018;219(2018):226–233.
  74. Murray DL, Kapke CA, Evermann JF, FullerTK. Infectious disease and the conservation of freeranging large carnivores. Anim Conserv. 1999;2(4): 241–254.
  75. Mwase M, Shimada K, Mumba C, Yabe J,
    Squarre D, Madarame H. Positive immunolabelling for feline infectious peritonitis in an African lion (Panthera leo) with bilateral panuveitis. J Comp Pathol. 2015;152(2–3):265–268.
  76. Naidenko SV, Pavlova EV, Kirilyuk VE. Detection of seasonal weight loss and a serologic survey of potential pathogens in wild Pallas’ cats (Felis [Otocolobus] manul) of the Daurian steppe, Russia. J Wildl Dis. 2014;50(2):188–194.
  77. Nicholson KL, Noon TH, Krausman PR. Serosurvey of mountain lions in southern Arizona. Wildl Soc Bull. 2012;36(3):615–620.
  78. Norris JM, Bosward KL, White JD, Baral RM,Catt MJ, Malik R. Clinicopathological findings associated with feline infectious peritonitis in Sydney, Australia: 42 cases (1990–2002). Aust Vet J. 2005; 83(11):666–673.
  79. O’Brien SJ, Roelke ME, Marker L, Newman A,Winkler CA, Meltzer D, Colly L, Evermann JF, Bush M, Wildt DE. Genetic basis for species vulnerability in the cheetah. Science. 1985;227(4693):1428–1434.
  80. Packer C, Altizer S, Appel M, Brown E, Martenson J, O’Brien SJ, Roelke-Parker M, HofmannLehmann R, Lutz H. Viruses of the Serengeti: patterns of infection and mortality in African lions. J Anim Ecol. 1999;68(6):1161–1178.
  81. Paul-Murphy J, Work T, Hunter D, McFie E,Fjelline D. Serologic survey and serum biochemical reference ranges of the free-ranging mountain lion (Felis concolor) in California. J Wildl Dis. 1994;30(2): 205–215.
  82. Pedersen NC. A review of feline infectiousperitonitis virus infection: 1963–2008. J Feline Med Surg. 2009;11(4):225–258.
  83. Pedersen NC, Allen CE, Lyons LE. Pathogenesisof feline enteric coronavirus infection. J Feline Med Surg. 2008;10(6):529–541.
  84. Pedersen NC, Perron M, Bannasch M, Montgomery E, Murakami E, Liepnieks M, Liu H. Efficacy and safety of the nucleoside analog GS-441524 for treatment of cats with naturally occurring feline infectious peritonitis. J Feline Med Surg. 2019;21(4): 271–281.
  85. Pedersen NC, Sato R, Foley JE, Poland AM.Common virus infection in cats, before and after being placed in shelters, with emphasis on feline enteric coronavirus. J Feline Med Surg. 2004;6(2):83–88.
  86. Pen˜a L, Garcia P, Jime´nez MA´ , Benito A, Alenza MDP, Sa´nchez B. Histopathological and immunohistochemical findings in lymphoid tissues of the endangered Iberian lynx (Lynx pardinus). Comp Immunol Microbiol Infect Dis. 2006;29(2):114–126.
  87. Persky ME, Jafarey YS, Christoff SE, MaddoxDD, Stowell SA, Norton TM. Tick paralysis in a freeranging bobcat (Lynx rufus). J Am Vet Med Assoc.
    2020;256(3):362–364.
  88. Pfeifer ML, Evermann JF, Roelke ME, GallinaAM, Ott RL, McKeirnan AJ. Feline infectious peritonitis in a captive cheetah. J Am Vet Med Assoc. 1983; 183(11):1317–1319.
  89. Philippa JDW, Leighton FA, Daoust PY, NielsenO, Pagliarulo M, Schwantje H, Shury T, Van Herwijnen R, Martina BEE, Kuiken T, Van de Bildt MWG, Osterhaus ADME. Antibodies to selected pathogens in free-ranging terrestrial carnivores and marine mammals in Canada. Vet Rec. 2004;155(5):135–140.
  90. Quigley KS, Evermann JF, Leathers CW, Armstrong DL, Goodrich J, Duncan NM, Miquelle DG. Morbillivirus infection in a wild Siberian tiger in the Russian Far East. J Wildl Dis. 2010;46(4):1252–1256.
  91. Ramsauer S, Bay G, Meli M, Hofmann-Lehmann R, Lutz H. Seroprevalence of selected infectious agents in a free-ranging, low-density lion population in the Central Kalahari Game Reserves in Botswana. Clin Vaccine Immunol. 2007;14(6):808–810.
  92. Rao AT, Acharjyo LN. Etiopathology of mortality in Indian lesser cats at Nandankanan Biological Park. Indian Vet J. 1994;71(6):550–553.
  93. Redford T, Al-Dissi AN. Feline infectious peritonitis in a cat presented because of papular skin lesions. Can Vet J. 2019;60(2):183–185.
  94. Riad A, Kassem I, Hockova B, Badrah M,Klugar M. Tongue ulcers associated with SARS-CoV2 infection: a case series. Oral Dis. 2020. doi:10.1111/ odi.13635
  95. Riley SPD, Foley J, Chomel B. Exposure tofeline and canine pathogens in bobcats and gray foxes in urban and rural zones of a national park in
    California. J Wildl Dis. 2004;40(1):11–22.
  96. Robert N, Walzer C. Pathological disorders incaptive cheetahs. In: Vargas A, Breitenmoser-Wu¨rsten C, Breitenmoser U (eds.). Conservacio´n ex situ del Lince Ibe´rico : un enfoque multidisciplinar [Iberian Lynx ex situ conservation : an interdisciplinary approach]. Madrid (Spain): Fundacio´n Biodiversidad/ IUCN Cat Specialist Group; 2009. p. 265–272.
  97. Roelke M, Forrester D, Jacobson E, Kollias G,Scott F, Barr M, Evermann J, Pirtle E. Seroprevalence of infectious disease agents in free-ranging Florida panthers (Felis concolor coryi). J Wildl Dis. 1993;29(1): 36–49.
  98. Roelke ME, Johnson WE, Milla´n J, Palomares F, Revilla E, Rodrı´guez A, Calzada J, Ferreras P, Leo´nVizcaı´no L, Delibes M, O’Brien SJ. Exposure to disease agents in the endangered Iberian lynx (Lynx pardinus). Eur J Wildl Res. 2008;54(2):171–178.
  99. Rottier PJM, Nakamura K, Schellen P, VoldersH, Haijema BJ. Acquisition of macrophage tropism during the pathogenesis of feline infectious peritonitis is determined by mutations in the feline coronavirus spike protein. J Virol. 2005;79(22):14122–14130.
  100. Ryser-Degiorgis M, Hofmann-Lehmann R,Leutenegger CM, Segerstad CH, Morner T, Mattsson R, Lutz H. Epizootiologic investigations of selected infectious disease agents in free-ranging Eurasian lynx from Sweden. J Wildl Dis. 2005;41(1):58–66.
  101. Scaglione FE, Biolatti C, Pregel P, Berio E,Cannizzo FT, Biolatti B, Bollo E. A survey on zoo mortality over a 12-year period in Italy. PeerJ. 2019;7: e6198.
  102. Schmidt-Posthaus H, Breitenmoser-Wu¨rsten C, Posthaus H, Bacciarini L, Breitenmoser U. Causes of mortality in reintroduced Eurasian lynx in Switzerland. J Wildl Dis. 2002;38(1):84–92.
  103. Schmitt AC, Reischak D, Clavac CL, MonforteCHL, Couto FT, Almeida ABPF, Santos DGG, Souza L, Alves C, Vecchi K. Infecca˜o pelos vı´rus da leucemia felina e da peritonite infecciosa felina em felı´deo selvagem de vida livre e de cativeiro da regia˜o do Pantanal matogrossense. [Feline leukaemia and feline peritonitis virus infection in captive and wildcats from Mato Grosso swamp region]. Acta Sci Vet. 2003;31(3): 185–188.
  104. Schrader GM, Whiteside DP, Slater OM, BlackSR. Conservative management of pyothorax in an Amur tiger (Panthera tigris altaica). J Zoo Wildl Med. 2012;43(2):425–429.
  105. Spencer JA. Lack of antibodies to coronaviruses in a captive cheetah (Acinonyx jubatus) population. J S Afr Vet Assoc. 1991;62(2):124–125.
  106. Spencer JA. Survey of antibodies to felineviruses in free-ranging lions. South Afr J Wildl Res, 1991;21(2):59–61.
  107. Srivastav A, Chakrabarty B. Seasonal distribution of deaths of tigers (Panthera tigris) in Indian zoos. Zoos Print J. 2002;17(3):741–743.
  108. Stephenson N, Swift P, Moeller RB, Worth SJ,Foley J. Feline infectious peritonitis in a mountain lion (Puma concolor), California, USA. J Wildl Dis. 2013; 49(2):408–412.
  109. Stidworthy MF, Lewis JCM, Penderis J, PalmerAC. Progressive encephalomyelopathy and cerebellar degeneration in a captive-bred snow leopard (Uncia uncia). Vet Rec. 2008;162(16):522–524.
  110. Stout AE, Andre´ NM, Jaimes JA, Millet JK, Whittaker GR. Coronaviruses in cats and other companion animals: where does SARS-CoV-2/COVID-19 fit? Vet Microbiol. 2020;247:108777. doi:10.1016/j. vetmic.2020.108777
  111. Terio KA, O’Brien T, Lamberski N, FamulaTR, Munson L. Amyloidosis in black-footed cats (Felis nigripes). Vet Pathol. 2008;45(3):393–400.
  112. Terio KA, Walzer ME, Schmidt-Kuntzel A,Marker L, Citino S. Diseases impacting captive and free-ranging cheetahs. In: Marker L, Boast, LK, Schmidt-Kuntzel A. Cheetahs: biology and conservation. Biodiversity of the world: conservation from genes to landscapes. Cambridge (MA): Academic Press; 2018. p. 349–364.
  113. Thalwitzer S, Wachter B, Robert N, Wibbelt G,Mu¨ller T, Lonzer J, Meli ML, Bay G, Hofer H, Lutz H. Seroprevalences to viral pathogens in free-ranging and captive cheetahs (Acinonyx jubatus) on Namibian farmland. Clin Vaccine Immunol. 2010;17(2):232–238.
  114. 114. Tresnan DB, Levis R, Holmes KV. Feline aminopeptidase N serves as a receptor for feline, canine, porcine, and human coronaviruses in serogroup I. J Virol. 1996;70(12):8669–8674.
  115. Trinkel M, Cooper D, Packer C, Slotow R.
    Inbreeding depression increases susceptibility to bovine tuberculosis in lions: an experimental test using an inbred-outbred contrast through translocation. J Wildl Dis. 2011;47(3):494–500.
  116. Truyen U, Stockhofe-Zurwieden N, KaadenOR, Pohlenz J. A case report: encephalitis in lions. Pathological and virological findings. Dtsch Tierarztl Wochenschr. 1990;97(2):89–91.
  117. Tuch K, Witte KH, Wu¨ller H. Feststellung der Felinen Infektio¨sen Peritonitis (FIP) bei Hauskatzen und Leoparden in Deutschland [Determination of feline infectious peritonitis (FIP) in domestic cats and leopards in Germany]. J Vet Med B Infect Dis Vet
    Public Health. 1974;21(6):426–441.
  118. Uhart MM, Rago MV, Marull CA, Ferreyra Hdel V, Pereira JA. Exposure to selected pathogens in Geoffroy’s cats and domestic carnivores from central Argentina. J Wildl Dis. 2012;48(4):899–909.
  119. Van Rensburg IB, Silkstone MA. Concomitantfeline infectious peritonitis and toxoplasmosis in a cheetah (Acinonyx jubatus). J S Afr Vet Assoc. 1984; 55(4):205–207.
  120. Walzer C, Ku¨bber-Heiss A, Gelbmann W, Suchy A, Weissenblo¨ck H. Acute hind limb paresis in Cheetah (Acinonyx jubatus) cubs. In: Proc Eur Assoc Zoo Wildl Vet; 1998. p. 267–274.
  121. Walzer C, Url A, Robert N, Ku¨bber-Heiss A, Nowotny N, Schmidt P. Idiopathic acute onset myelopathy in cheetah (Acinonyx jubatus) cubs. J Zoo Wildl Med. 2003;34(1):36–46.
  122. Wang L, Mitchell PK, Calle PP, Bartlett SL,McAloose D, Killian ML, Yuan F, Fang Y, Goodman LB, Fredrickson R, Elvinger F, Terio K, Franzen K, Stuber T, Diel DG, Torchetti MK. Complete genome sequence of SARS-CoV-2 in a tiger from a U.S. zoological collection. Microbiol Resour Announc. 2020;9(22):e00468–20.
  123. Wang Y, Su B, Hsieh L, Chueh L. An outbreakof feline infectious peritonitis in a Taiwanese shelter: molecular and epidemiological evidence for horizontal transmission of a novel type II feline coronavirus. Vet Res. 2013;44(1):57.
  124. Watt NJ, MacIntyre NJ, McOrist S. An extended outbreak of infectious peritonitis in a closed colony of European wildcats (Felis silvestris). J Comp Pathol. 1993;108(1):73–79.
  125. Weiss RC, Scott FW. Antibody-mediated enhancement of disease in feline infectious peritonitis: comparisons with dengue hemorrhagic fever. Comp Immunol Microbiol Infect Dis. 1981;4(2):175–189.
  126. Zook BC, King NW, Robison RL, McCombs
    HL. Ultrastructural evidence for the viral etiology of feline infectious peritonitis. Pathol Vet. 1968;5(1):91– 95.
sk_SKSK